 প্রফেসর ড. রাশিদুল হক
সারাংশ: যৌন প্রজনন পৃথিবীর জীবনের ইতিহাসে অন্যতম গুরুত্বপূর্ণ বিবর্তনীয় উদ্ভাবন। যদিও এটি অযৌন প্রজননের তুলনায় অধিক শক্তি, সময় এবং সম্পদের প্রয়োজন করে, তবুও অধিকাংশ জটিল জীব যৌন প্রজননের মাধ্যমেই বংশবিস্তার করে। এই প্রবন্ধে যৌন প্রজননের বিবর্তনীয় তাৎপর্য, জিনগত বৈচিত্র্য সৃষ্টিতে এর ভূমিকা এবং প্রাণীজগতের অভিযোজন ও দীর্ঘমেয়াদি টিকে থাকার ক্ষেত্রে এর গুরুত্ব আলোচনা করা হয়েছে। বিশেষভাবে রেড কুইন হাইপোথিসিস, মায়োসিস ও জিনগত পুনঃসমন্বয়, স্বাধীন বণ্টন, মুলার’স র্যাচেট, রোগপ্রতিরোধ ব্যবস্থার বিবর্তন এবং যৌন নির্বাচনের ভূমিকা বিশ্লেষণ করা হয়েছে। গবেষণা থেকে প্রতীয়মান হয় যে যৌন প্রজননের মাধ্যমে সৃষ্ট জিনগত বৈচিত্র্য পরিবেশগত পরিবর্তন, পরজীবী ও রোগজীবাণুর বিরুদ্ধে প্রতিরোধ এবং ক্ষতিকর মিউটেশনের সঞ্চয় হ্রাসে গুরুত্বপূর্ণ ভূমিকা পালন করে। একই সঙ্গে যৌন নির্বাচন ও সঙ্গী নির্বাচনের মাধ্যমে উন্নত জিনগত বৈশিষ্ট্যের বিস্তারও সম্ভব হয়। প্রবন্ধটির উপসংহার হলো যে যৌন প্রজনন কেবল বংশবিস্তার প্রক্রিয়া নয়; বরং এটি জীববৈচিত্র্য, অভিযোজন এবং বিবর্তনের অন্যতম মৌলিক চালিকাশক্তি।
মূলশব্দ: যৌন প্রজনন, জিনগত বৈচিত্র্য, রেড কুইন হাইপোথিসিস, মায়োসিস, যৌন নির্বাচন, বিবর্তন
ভূমিকা:
পৃথিবীতে জীবনের দীর্ঘ ইতিহাসে যৌন প্রজনন (sexual reproduction) নিঃসন্দেহে অন্যতম গুরুত্বপূর্ণ বিবর্তনীয় উদ্ভাবন। যদিও এই প্রক্রিয়ায় অযৌন প্রজননের তুলনায় অধিক শক্তি, সময় ও সম্পদের প্রয়োজন হয়, তবুও প্রাণীজগতের অধিকাংশ জটিল জীব আজ যৌন প্রজননের মাধ্যমেই বংশবিস্তার করে। এই আপাতবিরোধই জীববিজ্ঞানের একটি মৌলিক প্রশ্নের জন্ম দিয়েছে—যখন অযৌন প্রজনন দ্রুততর, অধিক দক্ষ এবং জিন স্থানান্তরের দৃষ্টিকোণ থেকে অধিক লাভজনক, তখন কেন যৌন প্রজননের মতো ব্যয়বহুল একটি ব্যবস্থা বিবর্তনের ধারায় এত ব্যাপকভাবে প্রতিষ্ঠিত হলো?
পৃথিবীতে প্রাণের প্রথম প্রায় ৩০০ কোটি বছর ধরে জীবনের প্রধান ভরসা ছিল অযৌন প্রজনন। এই পদ্ধতিতে একটি জীব তার জিনোমের প্রায় সম্পূর্ণ অংশ পরবর্তী প্রজন্মে স্থানান্তর করতে পারে। ব্যাকটেরিয়ার মতো এককোষী জীবেরা দ্রুত বিভাজনের মাধ্যমে জনসংখ্যা বৃদ্ধি করে এবং উৎপন্ন কোষগুলো সাধারণত মূল কোষের জিনগত অনুরূপ হয়। অর্থাৎ, কোনো রকম জিনগত মিশ্রণ বা আপোস ছাড়াই জিনের পূর্ণাঙ্গ স্থানান্তর ঘটে—এ যেন জিনগত ধারাবাহিকতার আদর্শ রূপ। কিন্তু এই ব্যবস্থার একটি মৌলিক সীমাবদ্ধতা রয়েছে—জিনগত বৈচিত্র্যের অভাব। পরিবর্তনশীল পরিবেশ, নতুন পরজীবী/ রোগজীবাণুর উদ্ভব, জলবায়ুগত পরিবর্তন এবং আন্তঃপ্রজাতিক প্রতিযোগিতার মুখে একই ধরনের জিনগত গঠন সর্বদা টিকে থাকার নিশ্চয়তা প্রদান করতে পারে না (Futuyma & Kirkpatrick, 2017)। এই প্রেক্ষাপটে যৌন প্রজননের বিবর্তনীয় গুরুত্ব স্পষ্ট হয়ে ওঠে। যৌন প্রজননে পিতা ও মাতার জিন একত্রিত হয়ে নতুন জিনগত সমন্বয় সৃষ্টি করে, যার ফলে জন্ম নেয় বৈচিত্র্যময় বংশধর। এই জিনগত বৈচিত্র্যই প্রাকৃতিক নির্বাচনের মূল কাঁচামাল, যার ওপর ভিত্তি করে অভিযোজন, নতুন বৈশিষ্ট্যের বিকাশ এবং দীর্ঘমেয়াদি বিবর্তন সংঘটিত হয় (Darwin, 1859; Futuyma & Kirkpatrick, 2017)।
জিনগত বৈচিত্র্যের গুরুত্ব বোঝার জন্য ১৮৪৫–১৮৪৯ সালের আইরিশ আলুর দুর্ভিক্ষ একটি ক্লাসিক উদাহরণ। সে সময় আয়ারল্যান্ডে ব্যাপকভাবে চাষ করা আলুগুলো মূলত ক্লোনাল পদ্ধতিতে উৎপাদিত হতো এবং তাদের মধ্যে জিনগত বৈচিত্র্য অত্যন্ত সীমিত ছিল (Woodham-Smith, 1962)। যখন ফাইটোপথোরা. একটি ছত্রাকের মতো অণুজীব ছড়িয়ে পড়ে, তখন অধিকাংশ আলুগাছ একই ধরনের সংবেদনশীলতা প্রদর্শন করে। ফলস্বরূপ ব্যাপক ফসলহানি ঘটে এবং দুর্ভিক্ষে প্রায় দশ লাখ মানুষের মৃত্যু ও আরও দশ লাখ মানুষের অভিবাসন ঘটে (Reader, 2008; Fry et al., 2015)। যদিও আলু একটি উদ্ভিদ এবং এই উদাহরণ সরাসরি প্রাণীজগতের নয়, তবুও এটি জিনগত বৈচিত্র্যের অভাবের সম্ভাব্য পরিণতি সম্পর্কে একটি গুরুত্বপূর্ণ শিক্ষা প্রদান করে। যদি কোনো জনসংখ্যার সদস্যরা জিনগতভাবে অত্যন্ত সাদৃশ্যপূর্ণ হয়, তবে একটি নতুন রোগ বা পরিবেশগত পরিবর্তন পুরো জনসংখ্যাকে একযোগে বিপন্ন করতে পারে।
সুতরাং, যৌন প্রজনন কেবল বংশবিস্তারের একটি উপায় নয়; এটি জীবনের পরিবর্তনশীলতার বিরুদ্ধে টিকে থাকার এক শক্তিশালী কৌশল। বৈচিত্র্যময় জনসংখ্যা পরিবেশগত চাপের মুখে বেশি স্থিতিশীল হয় এবং নতুন পরিস্থিতির সঙ্গে খাপ খাওয়ানোর সম্ভাবনাও বাড়ে। ফলে, যৌন প্রজননের ব্যয় সত্ত্বেও এর বিবর্তনীয় সুফল এতটাই গুরুত্বপূর্ণ যে এটি জটিল জীবের মধ্যে ব্যাপকভাবে প্রতিষ্ঠিত হয়েছে। এই প্রবন্ধে যৌন প্রজননের প্রক্রিয়া, জিনগত বৈচিত্র্য সৃষ্টিতে এর ভূমিকা, প্রাণীজগতের অভিযোজন ও বিবর্তনে এর গুরুত্ব এবং এর সঙ্গে সম্পর্কিত প্রধান বিবর্তনীয় তত্ত্বসমূহ আলোচনা করা হয়েছে।
পরজীবী ও রোগজীবাণুর বিরুদ্ধে যৌন প্রজননের ভূমিকা:
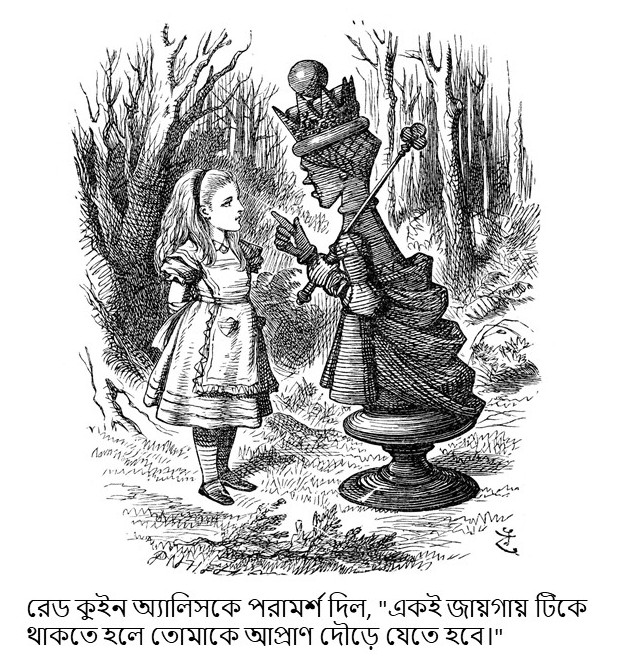
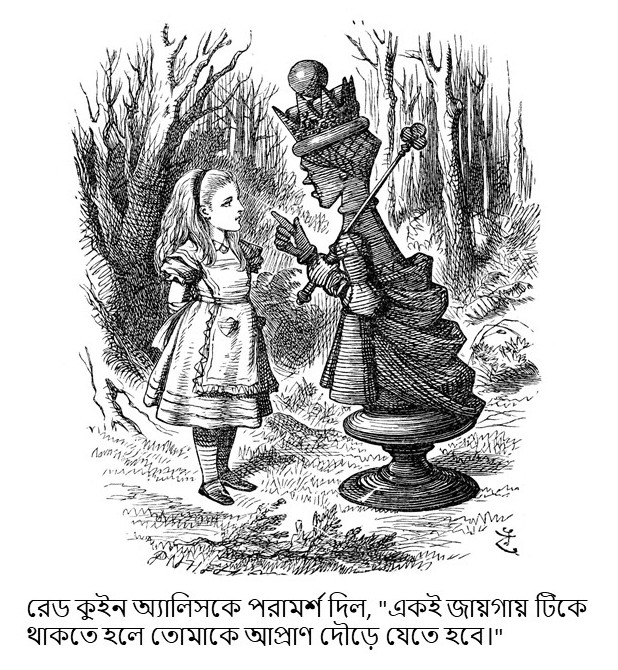
যৌন প্রজননের বিবর্তন ব্যাখ্যা করার অন্যতম গুরুত্বপূর্ণ তত্ত্ব হলো “রেড কুইন হাইপোথিসিস” যা প্রথম প্রস্তাব করেন লেই ভ্যান ভ্যালেন (Van Valen, 1973)। এই তত্ত্ব অনুসারে, পোষক (host) এবং পরজীবী (parasite) জীবের মধ্যে একটি অবিরাম সহবিবর্তনীয় প্রতিযোগিতা বিদ্যমান। পরজীবীরা ক্রমাগত নতুন উপায়ে পোষককে সংক্রমিত করার চেষ্টা করে, আর পোষক জীবেরা তাদের প্রতিরোধ ব্যবস্থাকে উন্নত করে। ফলে উভয় পক্ষকেই টিকে থাকার জন্য নিরন্তর অভিযোজিত হতে হয়। তত্ত্বটির নাম নেওয়া হয়েছে লুইস ক্যারলের ‘থ্রু দ্য লুকিং-গ্লাস’ গ্রন্থের রেড কুইন চরিত্র থেকে। সেখানে রেড কুইন অ্যালিসকে বলেছিল, “একই জায়গায় টিকে থাকতে হলে তোমাকে আপ্রাণ দৌড়ে যেতে হবে।” ভ্যান ভ্যালেন এই ধারণাকে জীববিজ্ঞানে প্রয়োগ করে দেখান যে প্রজাতিগুলোকেও তাদের অস্তিত্ব বজায় রাখারজন্য অবিরাম বিবর্তিত হতে হয় (Van Valen, 1973)। পরজীবী ও হোস্টের (আক্রান্ত জীব) সম্পর্কটাও ঠিক এমন। প্রকৃতিতে ভাইরাস, ব্যাকটেরিয়া এবং পরজীবীরা প্রতিনিয়ত নিজেদের মিউটেশন ঘটিয়ে শক্তিশালী হয়। কোনো প্রজাতি যদি কেবল ক্লোন বা একই জিনগত বৈশিষ্ট্যের বংশধর তৈরি করতে থাকে, তবে একটিমাত্র নতুন রোগজীবাণু এসে পুরো প্রজাতিকে নিশ্চিহ্ন করে দিতে পারে। যৌন প্রজননে পিতা ও মাতার ডিএনএ মিশ্রিত হয়ে নতুন জিনগত বিন্যাস তৈরি হয়, ফলে রোগজীবাণু বা পরিবেশ পরিবর্তনের সাথে খাপ খাইয়ে টিকে থাকার সম্ভাবনা বহুগুণ বেড়ে যায়।
হ্যামিল্টন, অ্যাক্সেলরড এবং ট্যানেসে (১৯৯০) যুক্তি দেন যে যৌন প্রজননের প্রধান সুবিধা হলো এটি দ্রুত পরিবর্তনশীল পরজীবীদের বিরুদ্ধে জিনগত বৈচিত্র্য সরবরাহ করে। অযৌন জনসংখ্যায় বংশধরেরা জিনগতভাবে প্রায় অভিন্ন হওয়ায় পরজীবীরা একবার কার্যকর সংক্রমণ কৌশল বিকাশ করলে পুরো জনসংখ্যাকে আক্রান্ত করতে পারে। বিপরীতে যৌন প্রজনন প্রতিটি প্রজন্মে নতুন জিনগত সমন্বয় সৃষ্টি করে, যা পরজীবীদের অভিযোজনকে কঠিন করে তোলে।
রেড কুইন হাইপোথিসিসের সবচেয়ে শক্তিশালী পরীক্ষামূলক সমর্থন পাওয়া যায় নিউজিল্যান্ডের মিঠাপানির শামুক (পোটামোপাইরগাস অ্যান্টিপোডারাম) এর ওপর গবেষণা থেকে। এটি জীববিজ্ঞানের ইতিহাসের অন্যতম সেরা একটি প্রাকৃতিক ল্যাবরেটরি। লিভলি (১৯৮৭) দেখান যে যেসব পরিবেশে পরজীবী সংক্রমণের হার বেশি, সেখানে যৌন প্রজননকারী শামুকের সংখ্যা উল্লেখযোগ্যভাবে বেশি। এর ফলে জন্ম নেওয়া নতুন শামুকগুলোর রোগ প্রতিরোধ ক্ষমতা অনেক শক্তিশালী হয়। কৃমিগুলো সহজে শামুককে আক্রমণ করতে পারে না। বিপরীতে, পরজীবীর চাপ কম এমন পরিবেশে অযৌন প্রজননকারী ক্লোনাল শামুক বেশি দেখা যায়। যেহেতু পরজীবীর ভয় নেই, তাই দ্রুত বংশবৃদ্ধি করার জন্য (১০০% জিন অক্ষুণ্ণ রেখে) এই পদ্ধতিটি তাদের জন্য সবচেয়ে লাভজনক হয়। পুরুষ ছাড়াই, স্ত্রী শামুকগুলো নিজেদের হুবহু ক্লোন তৈরি করে সন্তান জন্ম দেয়। পরবর্তী গবেষণাগুলোও এই ফলাফল সমর্থন করেছে (Jokela et al., 2009)।
মানব বিবর্তনের ক্ষেত্রেও পোষক-পরজীবী সহবিবর্তনের সুস্পষ্ট উদাহরণ পাওয়া যায়। আফ্রিকার ম্যালেরিয়াপ্রবণ অঞ্চলে সিকল-সেল বৈশিষ্ট্যের বিস্তার এর অন্যতম উদাহরণ, যেখানে ম্যালেরিয়া পরজীবী এবং মানুষের লোহিত রক্তকণিকার (আরবিসি) মধ্যকার লড়াইটি হাজার বছরের পুরোনো। হিমোগ্লোবিন জিনে একটি মিউটেশনের ফলে লোহিত রক্তকণিকার আকৃতি পরিবর্তিত হয়, গোল না হয়ে কাস্তের (Sickle) মতো বেঁকে যায়, যা ‘প্লাজমোডিয়াম ফ্যালসিপেরাম’ পরজীবীর বংশবৃদ্ধিকে বাধাগ্রস্ত করে (Allison, 1954)। ফলে সিকল-সেল বৈশিষ্ট্যের বাহকেরা ম্যালেরিয়ার বিরুদ্ধে আংশিক সুরক্ষা লাভ করে এবং প্রাকৃতিক নির্বাচনের মাধ্যমে এই বৈশিষ্ট্য জনসংখ্যায় টিকে থাকে। পরজীবীও কিন্তু দমে যায়নি। সাম্প্রতিক গবেষণায় দেখা গেছে, ম্যালেরিয়া পরজীবী এখন এমনভাবে বিবর্তিত হচ্ছে যেন তারা সিকল সেল বা বাঁকানো রক্তকণিকার ভেতরেও বেঁচে থাকার নতুন কৌশল বা জিন তৈরি করতে পারে। এটি একটি নিখুঁত অস্ত্র প্রতিযোগিতা, যেখানে এক পক্ষ ঢাল (বাঁকানো কোষ) বানালে, অন্য পক্ষ সেই ঢাল ভাঙার জন্য নতুন তলোয়ার (নতুন জিন) তৈরি করছে।
এই উদাহরণগুলো নির্দেশ করে যে যৌন প্রজননের মাধ্যমে সৃষ্ট জিনগত বৈচিত্র্য কেবল বিবর্তনের কাঁচামাল নয়; এটি পরজীবী ও রোগজীবাণুর বিরুদ্ধে জীবদের দীর্ঘমেয়াদি প্রতিরক্ষা ব্যবস্থারও একটি মৌলিক উপাদান।
যৌন প্রজননের জৈবিক ভিত্তি:
‘রেড কুইন হাইপোথিসিস’ শুধু একটি রূপক নয়। এটি একটি নির্দিষ্ট জৈবিক প্রক্রিয়া। এবং সেই প্রক্রিয়াটি জীবনের ইতিহাসে সবচেয়ে অসাধারণ আবিষ্কারগুলোর মধ্যে একটি। যৌন প্রজননের কেন্দ্রে রয়েছে মায়োসিস (meiosis) নামক বিশেষ কোষ বিভাজন প্রক্রিয়া, যার মাধ্যমে ডিপ্লয়েড (2n) জনন মাতৃকোষ থেকে হ্যাপ্লয়েড (n) গ্যামেট বা জননকোষ উৎপন্ন হয়। মায়োসিস কেবল ক্রোমোজোম সংখ্যা অর্ধেক করে না; এটি এমন একাধিক প্রক্রিয়ার মাধ্যমে জিনগত বৈচিত্র্য সৃষ্টি করে যা যৌন প্রজননের বিবর্তনীয় সাফল্যের ভিত্তি গঠন করে (Alberts et al., 2022; Campbell et al., 2020)। যৌন প্রজননের জৈবিক ভিত্তিটি নিচে বিস্তারিতভাবে ব্যাখ্যা করা হলো:
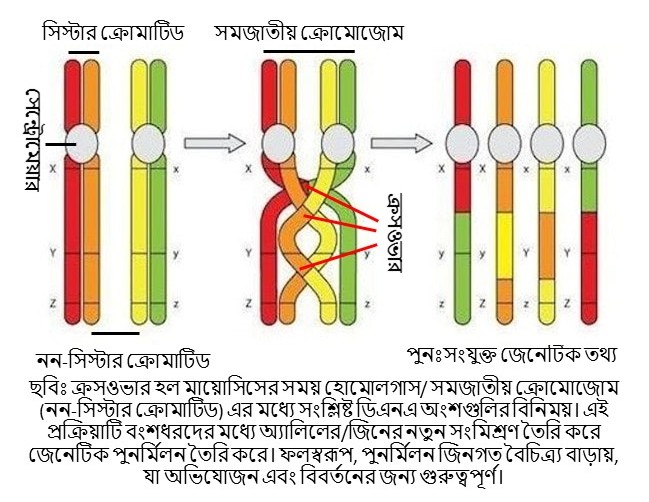
১. ক্রসিং-ওভার ও রিকম্বিনেশন/ পুনঃসমন্বয়:
মায়োসিসের প্রথম বিভাজনের প্রোফেজ- ১ পর্যায়ে সমজাতীয়/হোমোলোগাস ক্রোমোজোম যুগলবদ্ধ হয় এবং তাদের নন-সিস্টার ক্রোমাটিডগুলোর মধ্যে ডিএনএ অংশের বিনিময় ঘটে। এই প্রক্রিয়াকে ক্রসিং-ওভার (crossing-over) বলা হয়। ক্রসিং-ওভারের ফলে পিতৃসূত্রে ও মাতৃসূত্রে প্রাপ্ত ক্রোমোজোমের মধ্যে নতুন জিনগত সমন্বয় তৈরি হয় (ছবি দেখুন)। কোনো নতুন জিন সৃষ্টি না হলেও বিদ্যমান জিনগুলোর নতুন বিন্যাস গঠিত হয়, যা প্রতিটি গ্যামেটকে জিনগতভাবে অনন্য করে তোলে। ফলে একই পিতা-মাতার সন্তানদের মধ্যেও ব্যাপক জিনগত পার্থক্য দেখা যায় (Alberts et al., 2022)। এই প্রক্রিয়ার বিবর্তনীয় গুরুত্ব অত্যন্ত গভীর। প্রাকৃতিক নির্বাচন কোনো জীবের পৃথক জিনের উপর নয়, বরং সম্পূর্ণ জিনগত বৈশিষ্ট্যের সমষ্টির উপর কাজ করে। ক্রসিং-ওভার নতুন জিনগত সমন্বয় তৈরি করে অভিযোজনের সম্ভাবনা বৃদ্ধি করে এবং উপকারী মিউটেশনগুলোকে একই জিনোমে একত্রিত হওয়ার সুযোগ দেয়। একই সঙ্গে এটি ক্ষতিকর মিউটেশনগুলোকে বিচ্ছিন্ন করে প্রাকৃতিক নির্বাচনের মাধ্যমে অপসারণ সহজতর করে। আধুনিক জিনতত্ত্বের দৃষ্টিকোণ থেকে, ক্রসিং-ওভার পৃথিবীর জীববৈচিত্র্যের অন্যতম প্রধান উৎস। মানব জিনোমে প্রায় ২০,০০০-এরও বেশি প্রোটিন-কোডিং জিন থাকলেও তাদের সম্ভাব্য সমন্বয়ের সংখ্যা এত বিশাল যে কার্যত প্রতিটি মানুষের জিনগত পরিচয় স্বতন্ত্র হয়ে ওঠে (Alberts et al., 2022)।
যেহেতু এই প্রতিযোগিতা দুই পক্ষেই চলে, তাই প্রতিযোগিতার পরজীবী দিকটিতেই এর পূর্ণ হিংস্রতা প্রকাশ পায়। আদর্শ পরিস্থিতিতে একটি ব্যাকটেরিয়া প্রায় প্রতি ২০ মিনিটে বিভাজিত হয়। একটি মানব প্রজন্ম প্রায় ২৫ থেকে ৩০ বছরের হয়। এর মানে হলো, একটি মানব প্রজন্মের সন্তান উৎপাদনে যে সময় লাগে, সেই সময়ের মধ্যে একটি ব্যাকটেরিয়াঘটিত রোগজীবাণু প্রায় ৬৫০,০০০ প্রজন্মের বিবর্তন সম্পন্ন করার সময় পেয়ে যায়। মিউটেশন সঞ্চয় করার, পোষকের প্রতিরক্ষা ব্যবস্থার বিরুদ্ধে নতুন কৌশল পরীক্ষা করার, শনাক্তকরণ এড়ানোর নতুন পদ্ধতি বিকশিত করার, কোষীয় প্রতিবন্ধকতা ভেদ করার নতুন কৌশল তৈরি করার এবং রোগ প্রতিরোধ ক্ষমতা দমনের নতুন উপায় বের করার জন্য ৬৫০,০০০ সুযোগ পায়। সংখ্যাতত্ত্ব আমাদের পক্ষে নেই। তাই, একটি পর্যায়ে দুই পক্ষকে একটি সমঝোতায় আসতে হয়।
২. স্বাধীন বণ্টন (Independent Assortment):
জিনগত বৈচিত্র্য সৃষ্টির দ্বিতীয় প্রধান প্রক্রিয়া হলো স্বাধীন বণ্টন। মায়োসিস- ১ এর মেটাফেজ পর্যায়ে মাতৃ ও পিতৃসূত্রে প্রাপ্ত ক্রোমোজোমগুলো বিষুবরেখায় এলোমেলোভাবে অবস্থান গ্রহণ করে। পরবর্তীতে অ্যানাফেজ- ১ পর্যায়ে তারা পৃথক মেরুর দিকে সরে যায়। এই এলোমেলো বিন্যাসের ফলে প্রতিটি গ্যামেটে ক্রোমোজোমের ভিন্ন সমন্বয় তৈরি হয়। মানুষের ক্ষেত্রে ২৩ জোড়া ক্রোমোজোম থাকার কারণে স্বাধীন বণ্টনের মাধ্যমে একটি গ্যামেট তৈরির সময় সম্ভাব্য ক্রোমোজোম সমন্বয়ের সংখ্যা হয়: ২২৩, অর্থাৎ প্রায় ৮.৪ মিলিয়ন (৮৪ লক্ষ) সম্ভাব্য সমন্বয় (Campbell et al., 2020)। যখন পিতার শুক্রাণু এবং মাতার ডিম্বাণু মিলিত হয়, তখন সম্ভাব্য জিনগত সমন্বয়ের সংখ্যা দাঁড়ায়: (২২৩ X ২২৩) =২৪৬, যা প্রায় ৭০ ট্রিলিয়নেরও বেশি সম্ভাব্য জিনগত সমন্বয় তৈরি করতে সক্ষম। বাস্তবে ক্রসিং-ওভারও একই সঙ্গে সংঘটিত হয়। ফলে প্রকৃত সম্ভাব্য বৈচিত্র্যের পরিমাণ এই সংখ্যার তুলনায় আরও অনেক বেশি। এ কারণেই সহোদর ভাই-বোনরাও সাধারণত জিনগতভাবে অভিন্ন হয় না।
৩. এলোমেলো নিষেক (র্যান্ডম ফার্টিলাইজেশন)
জিনগত বৈচিত্র্যের তৃতীয় উৎস হলো এলোমেলো নিষেক। কোটি কোটি শুক্রাণুর মধ্যে যেকোনো একটির সাথে ডিম্বাণুর মিলনের ফলে সৃষ্ট ভ্রূণের জিনোটাইপ সম্পূর্ণ নতুন ও অনন্য রূপ নেয়। কোন শুক্রাণু কোন ডিম্বাণুর সঙ্গে মিলিত হবে তা মূলত সম্ভাবনানির্ভর। ফলে প্রতিটি নিষেক একটি নতুন ও অনন্য জিনগত সমন্বয় তৈরি করে। ক্রসিং-ওভার, স্বাধীন বণ্টন এবং এলোমেলো নিষেক—এই তিনটি প্রক্রিয়া একত্রে যৌন প্রজননকে বৈচিত্র্য সৃষ্টির একটি অসাধারণ কার্যকর ব্যবস্থা হিসেবে প্রতিষ্ঠিত করেছে। এই বৈচিত্র্য কোনো জনগোষ্ঠীকে পরিবেশের পরিবর্তন ও নতুন রোগের সাথে মানিয়ে নিতে সাহায্য করে।
রোগপ্রতিরোধ ব্যবস্থার বিবর্তন ও MHC/এমএইচসি -এর ভূমিকা:
যৌন প্রজননের অন্যতম গুরুত্বপূর্ণ বিবর্তনীয় সুবিধা হলো এটি রোগজীবাণু ও পরজীবীর বিরুদ্ধে প্রতিরোধ ক্ষমতা বৃদ্ধি করে। কিন্তু এই সুবিধা কেবল বৈচিত্র্য সৃষ্টির মধ্যেই সীমাবদ্ধ নয়; এটি জটিল রোগপ্রতিরোধ ব্যবস্থার বিবর্তনের সঙ্গেও ঘনিষ্ঠভাবে সম্পর্কিত। বহুকোষী প্রাণীদের রোগপ্রতিরোধ ব্যবস্থার অন্যতম কেন্দ্রীয় উপাদান হলো ‘মেজর হিস্টোকম্প্যাটিবিলিটি কমপ্লেক্স (এমএইচসি)’ নামক জিনসমষ্টি। মানুষের ক্ষেত্রে এই জিনসমষ্টিকে ‘হিউম্যান লিউকোসাইট অ্যান্টিজেন (HLA)’ বলা হয় (Janeway et al., 2001)। এমএইচসি জিনগুলো কোষপৃষ্ঠে বিশেষ প্রোটিন উৎপন্ন করে, যা ভাইরাস, ব্যাকটেরিয়া অথবা অন্যান্য রোগজীবাণুর প্রোটিন খণ্ড (antigen) শনাক্ত করে টি-লিম্ফোসাইটসহ অন্যান্য রোগপ্রতিরোধী কোষের কাছে উপস্থাপন করে। এর ফলে রোগপ্রতিরোধ ব্যবস্থা দ্রুত প্রতিক্রিয়া জানাতে পারে (Alberts et al., 2022)।
এমএইচসি বৈচিত্র্যের বিবর্তনীয় গুরুত্ব
এমএইচসি জিনসমষ্টি পৃথিবীর সবচেয়ে বহুরূপী (পলিমর্ফিক) জিনগুলোর মধ্যে অন্যতম। একটি মানব জনসংখ্যার মধ্যে হাজার হাজার ভিন্ন এমএইচসি অ্যালিল বিদ্যমান থাকতে পারে (Sommer, 2005)। এই বৈচিত্র্যের কারণ সরাসরি প্রাকৃতিক নির্বাচন। যদি কোনো রোগজীবাণু একটি নির্দিষ্ট এমএইচসি বৈশিষ্ট্যকে ফাঁকি দিতে সক্ষম হয়, তবে একই এমএইচসি -সম্পন্ন সমস্ত ব্যক্তিই ঝুঁকির মধ্যে পড়বে। কিন্তু জনসংখ্যায় এমএইচসি বৈচিত্র্য বেশি থাকলে রোগজীবাণুর পক্ষে পুরো জনসংখ্যাকে একযোগে সংক্রমিত করা কঠিন হয়ে যায় (Penn & Potts, 1999)। এভাবে এমএইচসি বৈচিত্র্য জনসংখ্যা পর্যায়ে এক ধরনের “বিবর্তনীয় বীমা” হিসেবে কাজ করে।
যৌন প্রজনন ও রোগপ্রতিরোধ ব্যবস্থার সহবিবর্তন
হ্যামিল্টন এবং সহকর্মীরা (1990) যুক্তি দিয়েছেন যে যৌন প্রজননের মাধ্যমে সৃষ্ট জিনগত পুনঃসমন্বয়/ রিকম্বিনেশন বিশেষভাবে রোগপ্রতিরোধ-সম্পর্কিত জিনগুলোর (যেমন HLA-A, HLA-B, HLA-C) বৈচিত্র্য বৃদ্ধি করে। এর ফলে প্রতিটি নতুন প্রজন্মে নতুন ধরনের এমএইচসি সমন্বয় তৈরি হয়। এই প্রক্রিয়া পোষক ও পরজীবীর মধ্যে চলমান সহবিবর্তনীয় অস্ত্র প্রতিযোগিতায় গুরুত্বপূর্ণ ভূমিকা পালন করে। রোগজীবাণু যখন কোনো নির্দিষ্ট জিনগত বিন্যাসের বিরুদ্ধে অভিযোজিত হয়, যৌন প্রজনন তখন নতুন জিনগত সমন্বয় সৃষ্টি করে সেই অভিযোজনকে অকার্যকর করে দিতে পারে। অতএব, রোগপ্রতিরোধ ব্যবস্থা এবং যৌন প্রজননকে পৃথকভাবে বিবেচনা করা যায় না। উভয়ই একই বিবর্তনীয় সমস্যার—দ্রুত বিবর্তিত পরজীবী ও রোগজীবাণুর বিরুদ্ধে দীর্ঘমেয়াদি টিকে থাকার—পরস্পরসম্পূরক সমাধান হিসেবে বিবর্তিত হয়েছে।
জিনগত বৈচিত্র্য ও জনসংখ্যার স্থিতিস্থাপকতা
জিনগত বৈচিত্র্যের গুরুত্ব কেবল ব্যক্তিগত পর্যায়ে সীমাবদ্ধ নয়; এটি সম্পূর্ণ জনসংখ্যার দীর্ঘমেয়াদি স্থায়িত্বের জন্য অপরিহার্য। বৈচিত্র্যময় জনসংখ্যায় পরিবেশগত পরিবর্তনের প্রতি প্রতিক্রিয়ার ভিন্নতা থাকে। ফলে নতুন রোগ, জলবায়ুগত পরিবর্তন বা খাদ্যসংকট দেখা দিলে অন্তত কিছু সদস্য অভিযোজিত হতে পারে এবং তাদের জিন পরবর্তী প্রজন্মে স্থানান্তরিত হয় (Futuyma & Kirkpatrick, 2017)। এই কারণেই জীববিজ্ঞানীরা জিনগত বৈচিত্র্যকে প্রাকৃতিক নির্বাচনের “কাঁচামাল” হিসেবে বর্ণনা করেন। বৈচিত্র্য ছাড়া অভিযোজন অসম্ভব, আর অভিযোজন ছাড়া দীর্ঘমেয়াদি বিবর্তনও সম্ভব নয়।
ক্ষতিকর মিউটেশনের সঞ্চয় এবং ‘মুলার র্যাচেট’:
রেড কুইন হাইপোথিসিস যৌন প্রজননের একটি গুরুত্বপূর্ণ ব্যাখ্যা প্রদান করলেও, এটি একমাত্র ব্যাখ্যা নয়। যৌন প্রজননের বিবর্তন ব্যাখ্যা করার আরেকটি প্রভাবশালী ধারণা হলো ক্ষতিকর মিউটেশন বা পরিব্যক্তির সঞ্চয় প্রতিরোধ। প্রতিবার একটি কোষ বিভাজিত হলে ডিএনএ প্রতিলিপি তৈরির সময় কিছু ত্রুটি বা মিউটেশন সৃষ্টি হওয়ার সম্ভাবনা থাকে। অধিকাংশ মিউটেশন নিরপেক্ষ হলেও কিছু মিউটেশন জীবের অভিযোজনক্ষমতা ও প্রজনন সাফল্য হ্রাস করতে পারে (Futuyma & Kirkpatrick, 2017)। অযৌন জনসংখ্যায় এই ক্ষতিকর মিউটেশনগুলো প্রজন্মের পর প্রজন্ম ধরে জমা হতে থাকে। কারণ সেখানে জিনগত পুনঃসমন্বয়ের কোনো কার্যকর ব্যবস্থা নেই যা ক্ষতিকর মিউটেশনগুলোকে পৃথক করে অপসারণ করতে পারে। নোবেল বিজয়ী হারমান জোসেফ মুলার এই প্রক্রিয়াকে একটি একমুখী র্যাচেটের সঙ্গে তুলনা করেছিলেন, যা একবার ঘুরলে আর পেছনে ফেরে না। এই ধারণাই “‘মুলার র্যাচেট” নামে পরিচিত (Muller, 1964)। যৌন প্রজনন এই সমস্যার একটি কার্যকর সমাধান প্রদান করে। মায়োসিস ও রিকম্বিনেশনের মাধ্যমে পিতামাতার জিনোম পুনর্বিন্যস্ত হয়। এর ফলে কিছু সন্তানের মধ্যে একাধিক ক্ষতিকর মিউটেশন একত্রিত হতে পারে, আবার অন্য কিছু সন্তান তুলনামূলকভাবে কম মিউটেশন বহন করতে পারে। প্রাকৃতিক নির্বাচন তখন অপেক্ষাকৃত সুস্থ ও কম মিউটেশনযুক্ত জীবদের অগ্রাধিকার দেয়। এভাবে দীর্ঘমেয়াদে ক্ষতিকর মিউটেশনের সঞ্চয় কমে যায় এবং জনসংখ্যার সামগ্রিক জিনগত স্বাস্থ্য বজায় থাকে (Felsenstein, 1974; Barton & Charlesworth, 1998)। বিবর্তনীয় জীববিজ্ঞানের দৃষ্টিতে এটি অত্যন্ত গুরুত্বপূর্ণ, কারণ দীর্ঘ সময় ধরে ক্ষতিকর মিউটেশনের সঞ্চয় কোনো জনসংখ্যাকে বিলুপ্তির দিকে ঠেলে দিতে পারে। যৌন প্রজনন সেই ঝুঁকি হ্রাস করে এবং জনসংখ্যার দীর্ঘমেয়াদি টিকে থাকা নিশ্চিত করতে সাহায্য করে।
সঙ্গী নির্বাচন এবং হ্যান্ডিক্যাপ প্রিন্সিপল (ব্যয়বহুল সংকেতের সততা):
যৌন প্রজননের অন্যতম গুরুত্বপূর্ণ ফল হলো জিনগত বৈচিত্র্য, কিন্তু এই বৈচিত্র্য কেবল এলোমেলোভাবে সৃষ্টি হয় না; এটি অনেকাংশে সঙ্গী নির্বাচনের দ্বারা প্রভাবিত হয়। চার্লস ডারউইন (১৮৭১) উপলব্ধি করেছিলেন যে জীবজগতের অনেক বৈশিষ্ট্য প্রাকৃতিক নির্বাচনের মাধ্যমে ব্যাখ্যা করা কঠিন। উদাহরণস্বরূপ, ময়ূরের বিশাল ও রঙিন লেজ বা হরিণের শিং বেঁচে থাকার জন্য সুবিধাজনক নয়; বরং এটি শিকারিদের আকর্ষণ করতে পারে এবং শক্তি ব্যয় বৃদ্ধি করে। তবুও এই বৈশিষ্ট্য বিবর্তিত হয়েছে। এই সমস্যা ব্যাখ্যা করার জন্য ডারউইন “যৌন নির্বাচন” ধারণা প্রস্তাব করেন। প্রাকৃতিক নির্বাচন যেখানে টিকে থাকার ক্ষমতার উপর কাজ করে, সেখানে যৌন নির্বাচন কাজ করে প্রজননগত সাফল্যের উপর (Darwin, 1871; Andersson, 1994)। প্রাণীজগতে, যে জীব বেশি সঙ্গী আকর্ষণ করতে পারে, সে পরবর্তী প্রজন্মে বেশি জিন স্থানান্তর করতে সক্ষম হয়। যৌন নির্বাচনের দুটি প্রধান রূপ রয়েছে: ১. অন্তঃলিঙ্গীয় নির্বাচন (ইন্ট্রাসেক্সুয়াল সিলেকশন) – একই লিঙ্গের সদস্যদের মধ্যে প্রতিযোগিতা, যেমন পুরুষ হরিণের মধ্যে শিং ব্যবহার করে লড়াই। ২. আন্তঃলিঙ্গীয় নির্বাচন (ইন্টারসেক্সুয়াল সিলেকশন) – এক লিঙ্গের সদস্যদের দ্বারা সম্ভাব্য সঙ্গী নির্বাচন, যেমন স্ত্রী ময়ূরের দ্বারা নির্দিষ্ট পুরুষ নির্বাচন। এই প্রক্রিয়াগুলো এমন সব বৈশিষ্ট্যের বিবর্তন ঘটাতে পারে যা সরাসরি টিকে থাকার জন্য উপকারী না হলেও প্রজনন সাফল্য বৃদ্ধি করে।
ব্যয়বহুল সংকেতের সততা
যৌন নির্বাচনের অন্যতম গুরুত্বপূর্ণ তাত্ত্বিক ব্যাখ্যা হলো আমোত জাহাভি (১৯৭৫) প্রস্তাবিত “হ্যান্ডিক্যাপ প্রিন্সিপল”। এই তত্ত্ব অনুসারে, সবচেয়ে নির্ভরযোগ্য সংকেত হলো সেই সংকেত, যা উৎপাদন বা রক্ষণাবেক্ষণ করা ব্যয়বহুল। যদি কোনো বৈশিষ্ট্য সহজে নকল করা যায়, তবে তা সঙ্গীর কাছে নির্ভরযোগ্য তথ্য সরবরাহ করতে পারবে না। কিন্তু যখন একটি বৈশিষ্ট্য বজায় রাখতে প্রচুর শক্তি, সম্পদ বা ঝুঁকি গ্রহণ করতে হয়, তখন কেবল উচ্চ মানের ও সুস্থ জীবই সেই বৈশিষ্ট্য প্রদর্শন করতে সক্ষম হয় (Zahavi, 1975; Zahavi & Zahavi, 1997)। ময়ূরের লেজ এই তত্ত্বের একটি ক্লাসিক উদাহরণ। বৃহৎ ও উজ্জ্বল লেজ বহন করা শক্তি-ব্যয়বহুল এবং শিকারির আক্রমণের ঝুঁকি বৃদ্ধি করে। ফলে এমন লেজ কেবল তুলনামূলকভাবে সুস্থ ও উচ্চমানের পুরুষ ময়ূরই বজায় রাখতে পারে। স্ত্রী ময়ূর যখন বড় লেজধারী পুরুষকে নির্বাচন করে, তখন সে পরোক্ষভাবে উন্নত জিনগত গুণমানের সঙ্গী নির্বাচন করছে (Andersson, 1994)। হ্যান্ডিক্যাপ প্রিন্সিপল আমাদের দেখায় যে প্রাণীজগতের অনেক অলঙ্কার, প্রদর্শন ও আচরণ নিছক সৌন্দর্যের জন্য নয়; এগুলো তথ্যবাহী সংকেত, যা সঙ্গীকে জীবের প্রকৃত গুণমান সম্পর্কে ধারণা দেয়। ফলে যৌন নির্বাচন ও হ্যান্ডিক্যাপ প্রিন্সিপল একত্রে জিনগত বৈচিত্র্য, সঙ্গী নির্বাচন এবং বিবর্তনের মধ্যে গভীর সম্পর্ককে ব্যাখ্যা করে।
এমএইচসি-নির্ভর সঙ্গী নির্বাচন
যৌন নির্বাচন কেবল বাহ্যিক অলঙ্কারের মধ্যেই সীমাবদ্ধ নয়; এটি রোগপ্রতিরোধ ব্যবস্থার সঙ্গেও সম্পর্কিত হতে পারে। বহু গবেষণায় দেখা গেছে যে অনেক প্রাণী নিজেদের তুলনায় ভিন্ন ‘মেজর হিস্টোকম্প্যাটিবিলিটি কমপ্লেক্স (এমএইচসি)’-সম্পন্ন সঙ্গী নির্বাচন করতে পারে (Penn & Potts, 1999)। এই পছন্দের বিবর্তনীয় সুবিধা হলো, ভিন্ন এমএইচসি-সম্পন্ন পিতামাতার সন্তানদের রোগপ্রতিরোধ ব্যবস্থা অধিক বৈচিত্র্যময় হয় এবং তারা বৃহত্তর পরিসরের রোগজীবাণুর বিরুদ্ধে সুরক্ষা লাভ করতে পারে (Sommer, 2005)। ধরা যাক, একটি স্ত্রী ইঁদুরের এমএইচসি অ্যালিল হলো A এবং B। গবেষণায় দেখা গেছে, সে প্রায়শই এমন পুরুষকে পছন্দ করে যার এমএইচসি অ্যালিল C এবং D। এর ফলে সন্তানেরা A, B, C, D-এর মধ্যে বিভিন্ন সমন্বয় পেতে পারে এবং অধিক বৈচিত্র্যময় রোগপ্রতিরোধ ব্যবস্থা লাভ করে।
মানুষের ক্ষেত্রে এই ধারণার সবচেয়ে বিখ্যাত পরীক্ষা পরিচালনা করেন ক্লাউস ভেডেকিন্ড এবং সহকর্মীরা। তাদের গবেষণায় দেখা যায় যে অনেক নারী নিজেদের এমএইচসি-এর তুলনায় ভিন্ন এমএইচসি-সম্পন্ন পুরুষদের গন্ধকে তুলনামূলকভাবে বেশি আকর্ষণীয় বলে মূল্যায়ন করেছিলেন (Wedekind et al., 1995)। তবে মানুষের ক্ষেত্রে এমএইচসি-নির্ভর সঙ্গী নির্বাচন সর্বজনস্বীকৃত নয়। পক্ষান্তরে, বিবর্তনবাদী মনোবিজ্ঞানী জিওফ্রি মিলার যুক্তি দিয়েছেন যে মানব মস্তিষ্কের অনেক উন্নত ক্ষমতা আংশিকভাবে যৌন নির্বাচনের ফল হতে পারে। তার মতে বুদ্ধিমত্তা, সৃজনশীলতা, ভাষা, সঙ্গীত, শিল্পকলা এবং বুদ্ধিদীপ্ত কথোপকথন সম্ভাব্য সঙ্গীর কাছে জিনগত গুণমানের ব্যয়বহুল সংকেত হিসেবে কাজ করতে পারে (Miller, 2000)। এই দৃষ্টিভঙ্গি অনুসারে, যেমন ময়ূরের লেজ তার জিনগত মানের সংকেত হতে পারে, তেমনি মানুষের সৃজনশীলতা ও বুদ্ধিবৃত্তিক ক্ষমতাও সম্ভাব্য সঙ্গীর কাছে তার জৈবিক সক্ষমতার ইঙ্গিত প্রদান করতে পারে। সুতরাং, এমএইচসি-এর ভূমিকা থাকলেও তা সম্ভবত অন্যান্য সামাজিক ও সাংস্কৃতিক উপাদানের সঙ্গে মিথস্ক্রিয়ার মাধ্যমে কাজ করে (Havlíček & Roberts, 2009)।
উপসংহার:
যৌন প্রজনন এবং জিনগত বৈচিত্র্য প্রাণীজগতের টিকে থাকা ও বিবর্তনের মৌলিক ভিত্তি। যদিও যৌন প্রজনন অযৌন প্রজননের তুলনায় অধিক ব্যয়বহুল, তবুও এর মাধ্যমে সৃষ্ট জিনগত পুনঃসমন্বয় জীবদের পরিবর্তনশীল পরিবেশ, রোগজীবাণু এবং প্রতিযোগিতামূলক পরিস্থিতির সঙ্গে খাপ খাইয়ে নিতে সক্ষম করে। রেড কুইন হাইপোথিসিস দেখায় যে যৌন প্রজনন পোষক ও পরজীবীর মধ্যকার অবিরাম বিবর্তনীয় অস্ত্র প্রতিযোগিতায় একটি কার্যকর কৌশল। মায়োসিস, ক্রসিং-ওভার এবং স্বাধীন বণ্টনের মাধ্যমে সৃষ্ট জিনগত বৈচিত্র্য প্রাকৃতিক নির্বাচনের জন্য প্রয়োজনীয় কাঁচামাল সরবরাহ করে। একই সঙ্গে মুলার র্যাচেট-এর প্রেক্ষাপটে যৌন প্রজনন ক্ষতিকর মিউটেশনের সঞ্চয় হ্রাস করে জনসংখ্যার দীর্ঘমেয়াদি জিনগত স্বাস্থ্য রক্ষা করে। অন্যদিকে, যৌন নির্বাচন এবং হ্যান্ডিক্যাপ প্রিন্সিপল দেখায় যে বিবর্তন কেবল টিকে থাকার জন্য নয়; বরং প্রজনন সাফল্যের জন্যও কাজ করে। এমএইচসি-নির্ভর সঙ্গী নির্বাচন থেকে শুরু করে মানব ভাষা ও সৃজনশীলতার সম্ভাব্য বিবর্তন পর্যন্ত বিভিন্ন ক্ষেত্রে যৌন নির্বাচনের প্রভাব লক্ষ্য করা যায়। সুতরাং, যৌন প্রজনন কেবল বংশবিস্তারের একটি প্রক্রিয়া নয়; এটি পৃথিবীর জীববৈচিত্র্য, অভিযোজন, সহবিবর্তন এবং দীর্ঘমেয়াদি বিবর্তনের অন্যতম প্রধান চালিকাশক্তি।
সাহায্যকারী নোট:
যৌন প্রজননের দ্বিগুণ খরচ (Twofold cost of sex): বিবর্তনীয় জীববিজ্ঞানের অন্যতম গুরুত্বপূর্ণ প্রশ্ন হলো—যৌন প্রজনন এত ব্যয়বহুল হওয়া সত্ত্বেও কেন এটি এত ব্যাপকভাবে বিদ্যমান? এই সমস্যাকে “যৌন প্রজননের দ্বিগুণ খরচ” বলা হয়, যা জন মেনার্ড স্মিথ (John Maynard Smith) বিশেষভাবে বিশ্লেষণ করেছিলেন। অযৌন প্রজননে একটি স্ত্রী জীব একাই সন্তান উৎপাদন করতে পারে এবং তার সমস্ত জিন সন্তানের মধ্যে স্থানান্তরিত হয়। কিন্তু যৌন প্রজননে একটি স্ত্রীকে একজন পুরুষের সঙ্গে প্রজনন করতে হয়, ফলে প্রতিটি সন্তান তার জিনের মাত্র ৫০% মায়ের কাছ থেকে পায়। এছাড়া জনসংখ্যার প্রায় অর্ধেক সদস্য পুরুষ হওয়ায় তারা সরাসরি সন্তান জন্ম দেয় না। ফলে একই সম্পদ ব্যবহার করেও যৌন জনসংখ্যার বৃদ্ধির হার অযৌন জনসংখ্যার তুলনায় প্রায় অর্ধেক হতে পারে। উদাহরণস্বরূপ, যদি ১০০টি অযৌন স্ত্রী জীব প্রত্যেকে দুটি করে কন্যা সন্তান উৎপন্ন করে, তবে পরবর্তী প্রজন্মে তাদের সংখ্যা হবে ২০০। কিন্তু ১০০টি যৌন জীবের মধ্যে যদি ৫০টি স্ত্রী ও ৫০টি পুরুষ থাকে এবং প্রতিটি স্ত্রী দুটি সন্তান জন্ম দেয়, তবে পরবর্তী প্রজন্মে মোট সন্তান হবে ১০০টি। অর্থাৎ অযৌন জনসংখ্যা একই সময়ে দ্বিগুণ দ্রুত বৃদ্ধি পায়। এই কারণেই যৌন প্রজননকে বিবর্তনের একটি “প্যারাডক্স” বা ধাঁধা বলা হয়। তবুও যৌন প্রজনন টিকে আছে, কারণ এটি জিনগত বৈচিত্র্য সৃষ্টি করে, ক্ষতিকর মিউটেশন দূর করতে সাহায্য করে এবং পরিবর্তনশীল পরিবেশ ও পরজীবীর বিরুদ্ধে অভিযোজনের সুযোগ বাড়ায়। দীর্ঘমেয়াদে এই সুবিধাগুলো যৌন প্রজননের তাৎক্ষণিক ব্যয়কে অতিক্রম করে।
মায়োসিস বিভাজন (Meiosis): এটি এমন একটি বিশেষ কোষ বিভাজন প্রক্রিয়া, যার মাধ্যমে একটি ডিপ্লয়েড (2n) জনন মাতৃকোষ থেকে চারটি হ্যাপ্লয়েড (n) কন্যা কোষ উৎপন্ন হয়। এই প্রক্রিয়ায় ক্রোমোজোম সংখ্যা অর্ধেকে নেমে আসে, ফলে প্রজাতির ক্রোমোজোম সংখ্যা প্রজন্মের পর প্রজন্ম অপরিবর্তিত থাকে। মায়োসিস দুটি ধারাবাহিক বিভাজনের মাধ্যমে সম্পন্ন হয়:
মায়োসিস-I (হ্রাসমূলক বিভাজন): প্রোফেজ-I পর্যায়ে সমজাতীয় ক্রোমোজোম যুগলবদ্ধ হয় এবং তাদের নন-সিস্টার ক্রোমাটিডগুলোর মধ্যে ক্রসিং-ওভার ও রিকম্বিনেশন ঘটে, ফলে নতুন চারিত্রিক বৈশিষ্ট্যেরও আবির্ভাব ঘটে। জিনগত বৈচিত্র্য সৃষ্টি করে। প্রোফেজ-I পাঁচটি উপদশায় বিভক্ত: লেপ্টোটিন, জাইগোটিন, প্যাকাইটিন, ডিপ্লোটিন এবং ডায়াকাইনেসিস। মেটাফেজ-I পর্যায়ে সমজাতীয় ক্রোমোজোমগুলো বিষুবরেখায় অবস্থান করে। অ্যানাফেজ-I পর্যায়ে সমজাতীয় ক্রোমোজোম পৃথক হয়ে বিপরীত মেরুতে সরে যায়। টেলোফেজ-I শেষে দুটি হ্যাপ্লয়েড কোষ গঠিত হয়।
মায়োসিস-II (সমীকরণমূলক বিভাজন): এটি মাইটোসিসের মতো ঘটে। মেটাফেজ-II-তে ক্রোমোজোমগুলো বিষুবরেখায় সাজে। অ্যানাফেজ-II-তে বোন ক্রোমাটিড পৃথক হয়ে যায়। টেলোফেজ-II ও সাইটোকাইনেসিসের মাধ্যমে চারটি হ্যাপ্লয়েড কন্যা কোষ সৃষ্টি হয়।
গুরুত্ব: মায়োসিস গ্যামেট (শুক্রাণু ও ডিম্বাণু) গঠন করে, ক্রোমোজোম সংখ্যা অর্ধেক করে এবং ক্রসিং-ওভার ও স্বাধীন বণ্টনের মাধ্যমে জিনগত বৈচিত্র্য সৃষ্টি করে, যা বিবর্তন ও অভিযোজনের জন্য অত্যন্ত গুরুত্বপূর্ণ।
তথ্যসূত্র (References):
Alberts, B., Johnson, A., Lewis, J et al. (2022). Molecular biology of the cell (7th ed.). Garland Science.
Allison, A. C. (1954). Protection afforded by sickle-cell trait against subtertian malarial infection. British Medical Journal, 1(4857), 290–294.
Andersson, M. (1994). Sexual selection. Princeton University Press.
Barton, N. H., & Charlesworth, B. (1998). Why sex and recombination? Science, 281 (5385), 1986–1990.
Campbell, N. A., Urry, L. A., Cain et al. (2020). Campbell biology (12th ed.). Pearson.
Darwin, C. (1859). On the origin of species. John Murray.
Darwin, C. (1871). The descent of man, and selection in relation to sex. John Murray.
Felsenstein, J. (1974). The evolutionary advantage of recombination. Genetics, 78 (2), 737–756.
Fry, W. E., Birch, P. R. J., Judelson, et al. (2015). Five reasons to consider Phytophthora infestans a reemerging pathogen. Phytopathology, 105 (7), 966–981.
Futuyma, D. J., & Kirkpatrick, M. (2017). Evolution (4th ed.). Sinauer Associates.
Hamilton, W. D., Axelrod, R., & Tanese, R. (1990). Sexual reproduction as an adaptation to resist parasites. Proceedings of the National Academy of Sciences, 87 (9), 3566–3573.
Havlíček, J., & Roberts, S. C. (2009). MHC-correlated mate choice in humans. Psychoneuroendocrinology, 34 (4), 497–512.
Janeway, C. A., Travers, P., Walport, M., et al. (2001). Immunobiology (5th ed.). Garland Science.
Jokela, J., Dybdahl, M. F., & Lively, C. M. (2009). The maintenance of sex, clonal dynamics, and host–parasite coevolution. Philosophical Transactions of the Royal Society B, 364 (1523), 151–161.
Lively, C. M. (1987). Evidence from a New Zealand snail for the maintenance of sex by parasitism. Nature, 328(6127), 519–521.
Maynard Smith, J. (1978). The evolution of sex. Cambridge University Press.
Miller, G. (2000). The mating mind. Doubleday.
Muller, H. J. (1964). The relation of recombination to mutational advance. Mutation Research, 1 (1), 2–9.
Penn, D. J., & Potts, W. K. (1999). The evolution of mating preferences and major histocompatibility complex genes. The American Naturalist, 153 (2), 145–164.
Reader, J. (2008). Potato: A history of the propitious esculent. Yale University Press.
Ridley, M. (1993). The red queen: Sex and the evolution of human nature. Viking.
Sommer, S. (2005). The importance of immune gene variability (MHC) in evolutionary ecology and conservation. Frontiers in Zoology, 2 (16), 1–18.
Van Valen, L. (1973). A new evolutionary law. Evolutionary Theory, 1, 1–30.
Wedekind, C., Seebeck, T., Bettens, F., et al. (1995). MHC-dependent mate preferences in humans. Proceedings of the Royal Society B, 260 (1359), 245–249.
Zahavi, A. (1975). Mate selection—A selection for a handicap. Journal of Theoretical Biology, 53 (1), 205–214.
Zahavi, A., & Zahavi, A. (1997). The handicap principle: A missing piece of Darwin’s puzzle. Oxford U.