০৫:৩৩ অপরাহ্ন, বৃহস্পতিবার, ২৪ সেপ্টেম্বর ২০২৬, ৯ আশ্বিন ১৪৩৩ বঙ্গাব্দ
আণবিক ফিসফিসানি থেকেই শুরু হয়েছিল জীবনের যোগাযোগের ভাষা। কোটি বছরের বিবর্তনে সেই সরল সংকেতই রূপ নিয়েছে জটিল, সমন্বিত কোষীয় সিম্ফনিতে।

কোষীয় সংকেতের বিবর্তনশীল গল্প: যখন কোষগুলো বহু ভাষায় কথা বলে

"সিগন্যাল ট্রান্সডাকশন" বা “কোষীয় সংকেতসংবহন” কেবল বহুকোষী জীবনের একটি আধুনিক জটিলতা নয়; এটি একটি মৌলিক, প্রাচীন প্রক্রিয়া যা কোটি কোটি বছর ধরে কোষগুলোকে তাদের আশেপাশের পরিবেশ ব্যাখ্যা করতে সক্ষম করেছে।

কল্পনা করুন—আপনার শরীরের প্রতিটি কোষ এক একটি ক্ষুদ্র নগরী, যারা অবিরাম বার্তা আদান-প্রদানের মাধ্যমে জীবনকে সচল রাখে; কখনও রাসায়নিক সংকেত, কখনও বৈদ্যুতিক সাড়া, কখনও হরমোনের দূরযাত্রা—এই বহুভাষিক যোগাযোগের বিজ্ঞানই “সিগন্যাল ট্রান্সডাকশন”, যার সূচনা আদিম ব্যাকটেরিয়ার সরল সংবেদন থেকে আর যার পরিণতি মানুষের জটিল কোষীয় নেটওয়ার্কে; এই বিবর্তনশীল আণবিক ভাষার বিস্ময়কর ইতিহাসই প্রফেসর ড. রাশিদুল হক তাঁর প্রবন্ধে তুলে ধরেছেন, যেখানে এককোষী জীবের সহজ সংকেতব্যবস্থা ধীরে ধীরে রূপ নিয়েছে বহুকোষী প্রাণীর সূক্ষ্ম, সমন্বিত ও প্রায় বুদ্ধিমত্তাসম্পন্ন যোগাযোগ ব্যবস্থায়।

সারাংশ: সিগন্যাল ট্রান্সডাকশন বা সংকেতসংবহন, যে পদ্ধতির মাধ্যমে কোষগুলো তাদের পরিবেশকে অনুভব করে এবং প্রতিক্রিয়া জানায়, তা ব্যাকটেরিয়াতে সহজ, স্থানীয় পরিবেশগত পর্যবেক্ষণ থেকে বহুকোষী প্রাণীদের মধ্যে অত্যন্ত জটিল, সমন্বিত যোগাযোগ নেটওয়ার্কে বিবর্তিত হয়েছে। সংকেতসংবহনের বিবর্তনীয় ইতিহাসে এককোষী জীবেদের ভূমিকা ধারণা করা হয় মধ্যপন্থার- তারা এককোষী এবং বহুকোষীয় জীবেদের মধ্যে সেতু রচনা করে। এই বিবর্তনীয় গতিপথটি কোষের আনুগত্য, পার্থক্য এবং আন্তঃকোষীয় যোগাযোগকে সহজতর করার জন্য প্রাচীন সংকেত পথের সংযোজন এবং বিস্তৃতির সাথে জড়িত।


মূল শব্দ: কোষ সংকেত/সিগন্যালিং, যোগাযোগ, ট্রান্সডাকশন, কাইনেজ, জি প্রোটিন, রিসেপ্টর প্রোটিন, বহুকোষীত্ব।


ভূমিকা

“সিগন্যাল ট্রান্সডাকশন” বা “কোষীয় সংকেতসংবহন” কেবল বহুকোষী জীবনের একটি আধুনিক জটিলতা নয়; এটি একটি মৌলিক, প্রাচীন প্রক্রিয়া যা কোটি কোটি বছর ধরে কোষগুলোকে তাদের আশেপাশের পরিবেশ ব্যাখ্যা করতে সক্ষম করেছে। প্রাচীনতম আদিকোষীয় জীব (প্রোক্যারিওট) থেকে শুরু করে মানুষের জটিল কোষ পর্যন্ত, পরিবেশগত সংকেত বা উদ্দীপনা (signal)— যেমন পুষ্টি, আলো বা চাপ— গ্রহণ, প্রক্রিয়াকরণ এবং প্রতিক্রিয়া করার ক্ষমতা বেঁচে থাকার এবং অভিযোজনের জন্য একটি পূর্বশর্ত। কাজেই সংকেত-সংবহন প্রক্রিয়া হলো জৈবিক অস্তিত্বের ভিত্তিপ্রস্তর। যদিও সমস্ত কোষীয় যোগাযোগ রিসেপ্টরগুলোর সক্রিয়করণের উপর নির্ভর করে না, তবে এটি একটি সবচেয়ে সাধারণ প্রক্রিয়া যার মাধ্যমে কোষগুলো তাদের পরিবেশ অনুভব করে বা একে অপরের সাথে যোগাযোগ করে। যেসব সংকেতবাহী অণু (যেমন পুষ্টি, হরমোন, নিউরোট্রান্সমিটার) রিসেপ্টরের সাথে আবদ্ধ হয়, তাদের প্রায়শই লাইগ্যান্ড বলা হয়। যদিও ব্যাকটেরিয়া থেকে মানুষের মধ্যে তিন-পর্যায়ের যে ক্যাসকেড, অর্থাৎ তথ্য গ্রহণ, তার প্রক্রিয়াকরণ এবং প্রতিক্রিয়া, তা উল্লেখযোগ্যভাবে সংরক্ষিত, তবে এই সিগন্যালিং নেটওয়ার্কগুলোর জটিলতা নাটকীয়ভাবে বিকশিত হয়েছে। বহুকোষীত্বের উত্থানের ফলে ব্যাকটেরিয়ায় ব্যবহৃত “দ্বি-উপাদান” (হিস্টিডিন কাইনেজ রিসেপ্টর এবং রেসপন্স রেগুলেটর) ব্যবস্থার মতো সরল, এককোষী পুষ্টি সংবেদন থেকে পরিশীলিত, সমন্বিত এবং বিভাগীয় নেটওয়ার্কগুলোতে রূপান্তর প্রয়োজন হয়েছিল, যা কোষের ভাগ্য, বিকাশ এবং টিস্যু হোমিওস্ট্যাসিস নিয়ন্ত্রণ করে। প্রোটিন কাইনেজ এবং জি-প্রোটিন-সংযুক্ত রিসেপ্টরগুলোয় বিবর্তনীয় চাপ, ডুপ্লিকেশন এবং ডোমেন বৈচিত্র্যের মাধ্যমে, মৌলিক পরিবেশগত স্বীকৃতি ব্যবস্থাগুলোকে জটিল নিয়ন্ত্রক সংযোগে রূপান্তরিত করেছে। এই প্রবন্ধে, কাছের বা দূরের কোষগুলো একে অপরের সাথে কীভাবে যোগাযোগ করে, তার মৌলিক নীতিগুলো বিবর্তনের আলোকে আলোচিত হয়েছে, সাথে বিভিন্ন ধরনের স্বল্প-পাল্লার এবং দীর্ঘ-পাল্লার সংকেতসমূহ বিবেচিত হয়েছে।

ব্যাকটেরিয়ার সংকেত সংবহন কী

ব্যাকটেরিয়ায় সিগন্যাল ট্রান্সডাকশন বা সংকেতসংবহন পদ্ধতি দুইটি প্রাথমিক উপাদান নিয়ে গঠিত— ‘হিস্টিডিন কাইনেজ (HK) রিসেপ্টর’ এবং ‘রেসপন্স রেগুলেটর’— যা তাদেরকে পরিবেশগত পরিবর্তনগুলো অনুভব করতে এবং মানিয়ে নিতে সাহায্য করে।  ব্যাকটেরীয় ‘হিস্টিডিন কাইনেজ রিসেপ্টর’ সাধারণত একটি ঝিল্লি-আবদ্ধ প্রোটিন, যা সেন্সর হিসেবে বহিঃকোষীয় উদ্দীপনা সনাক্ত করে (যেমন pH বা পুষ্টি) এবং তার নিজস্ব হিস্টিডিন অবশিষ্টাংশ  নিজেই ফসফোরিলেট করে। সাইটোপ্লাজমে অবস্থিত  ‘রেসপন্স রেগুলেটর’ নামে প্রোটিনটি HK থেকে ফসফেট গ্রহণ করে সক্রিয় হয়,  যা জিনের প্রকাশ পরিবর্তন করার জন্য ট্রান্সক্রিপশন ফ্যাক্টর হিসেবে কাজ করতে সক্ষম, অথবা কেমোট্যাক্সিসে একটি এনজাইম হিসেবে কাজ করতে সক্ষম করে। এই ফসফোরিলেশন-চালিত সিস্টেম ব্যাকটেরিয়াকে ভিরুলেন্স, বায়োফিল্ম উন্নয়ন এবং অ্যান্টিবায়োটিক প্রতিরোধের মতো গুরুত্বপূর্ণ প্রক্রিয়াগুলোকে নিয়ন্ত্রণ করতে দেয়।

এককোষী এবং বহুকোষীয় জীবেদের মধ্যে সেতু রচনা

এককোষী জীবগুলো (ইউক্যারিওট) হলো “আণবিক জীবাশ্ম”, যাদের প্রাচীন সংকেতপথ আদিকোষীয়-সংবেদন এবং বহুকোষীয় (প্রাণী)-সংকেতের মধ্যে ব্যবধান পূরণ করে। এই জীবগুলো, বিশেষ করে কোয়ানোফ্ল্যাজেলেট (Choanoflagellates) জলজ জীবেদের, প্রাণীদের নিকটতম জীবিত আত্মীয়, এমনসব জিনগত বৈশিষ্ট্য ধারণ করে, যার মধ্যে মূল বহুকোষীয় জীবেদের সংকেতসংবহনের উপাদানগুলোর সমজাতীয় উপাদান রয়েছে – যেমন নচ (Notch), ডেল্টা এবং রিসেপ্টর টাইরোসিন কাইনেজ (RTK) – যা বহুকোষী প্রাণীর বিবর্তনের আগেই বিদ্যমান ছিল। এছাড়া, তাদের মধ্যে ক্যাডারিন (Cadherin) জিনের এক বৈচিত্রময় ভান্ডারও রয়েছে, যা শুধুমাত্র বহুকোষী প্রাণীদের কোষ-থেকে-কোষ আনুগত্য ও আসঞ্জনের জন্য বিশেষ বৈশিষ্ট্য বলে মনে করা হতো।

তবে, ব্যাকটেরিয়ার তুলনায় অ্যামিবার মতো এককোষী প্রকৃতকোষীয় (ইউক্যারিওট) জীবের মধ্যে সংকেত সংবহন পদ্ধতি আরও উন্নত এবং জটিল। অ্যামিবাতে, বিশেষ করে ডিক্টিওস্টেলিয়াম ডিসকোইডিয়াম এবং এন্টামিবা হিস্টোলাইটিকা-তে, “কোষীয় সংকেত”, আচরণ, গতিশীলতা এবং পার্থক্য নিয়ন্ত্রণের জন্য জি-প্রোটিন-সংযুক্ত রিসেপ্টর (যা ব্যাকটেরিয়ায় উদ্ভব হয়নি), cAMP-বাহিত সংকেত, ঝিল্লি-আবদ্ধ কাইনেজ এবং ফসফোরিলেশন ক্যাসকেডের উপর ব্যাপকভাবে নির্ভর করে, যার অনুরূপ মানব ইমিউন সিস্টেমের ম্যাক্রোফেজে (যা  অ্যামিবাগুলোর উত্তরসূরি হিসেবে বিবেচিত) পাওয়া যায়। এই জীবগুলো পরিবেশগত সংকেত – যেমন খাদ্যের প্রাপ্যতা, কোষের ঘনত্ব এবং চাপ – কেমোট্যাক্সিস এবং এনসিস্টেশন/Encystation (গতিশীল, সক্রিয় অবস্থা থেকে সিস্টে রূপান্তর) নিয়ন্ত্রণকারী পথগুলো শুরু করার জন্য পৃষ্ঠ রিসেপ্টর ব্যবহার করে অনুভব করে। এই প্রক্রিয়াগুলো অ্যামিবা জীবেদের পরিবেশগত পরিবর্তনগুলো (পুষ্টি, চাপ) অনুভব করতে বা প্রতিবেশিদের সাথে যোগাযোগ করতে দেয়।

কোষীয় সংকেত পথের বৈচিত্র্য এবং বিবর্তন

দূরত্ব বিবেচনায় সংকেত সংবহনের ধরন: একটি জটিল, বহুকোষী পরিবেশের মধ্যে গতি, নির্দিষ্টতা এবং সমন্বয়ের প্রয়োজনীয়তার ভারসাম্য বজায় রাখার জন্য কোষগুলো দূরত্বের উপর ভিত্তি করে বিভিন্ন ধরনের সংকেত প্রেরণের পদ্ধতি তৈরি করেছে। এই বিশেষ প্রক্রিয়াগুলো কোষগুলোকে নিকটবর্তী প্রতিবেশি, দূরবর্তী অঙ্গ বা নিজেদের সাথে কার্যকরভাবে যোগাযোগ করতে দেয়, যা পুরো শরীরের হোমিওস্ট্যাসিস/ভারসাম্যতা নিশ্চিত করে।

সংকেত সংবহনের দূরত্ব বিবেচনায় বহুকোষী জীবের মধ্যে রাসায়নিক সংকেতের চারটি মৌলিক বিভাগ রয়েছে: ১) প্যারাক্রাইন (একটি কোষ নিকটবর্তী একটি কোষকে লক্ষ্য করে)—উদাহরণস্বরূপ, নিউরোট্রান্সমিটারগুলো স্নায়ু কোষের মধ্যে সিন্যাপ্সের মাধ্যমে পরবর্তী স্নায়ুকোষে (পোস্টসিন্যাপ্টিক) সংকেত স্থানান্তর করে; ২) এন্ডোক্রাইন —বিভিন্ন গ্রন্থি থেকে নিঃসৃত হরমোনগুলো রক্তপ্রবাহের মাধ্যমে দূরবর্তী কোষকে লক্ষ্য করে; ৩) অটোক্রাইন (একটি কোষ নিজেকে লক্ষ্য করে)— উদাহরণস্বরূপ, যদি একটি কোষ ভাইরাস দ্বারা সংক্রামিত হয়, কোষটি তার নিজের মৃত্যুর জন্য সংকেত দিতে পারে, প্রক্রিয়ায় ভাইরাসটিকে হত্যা করা হয়; এবং ৪) জাক্সটাক্রাইন (Juxtacrine)/সরাসরি সংকেত (একটি কোষ গ্যাপ জংশন দ্বারা সংলগ্ন কোষকে লক্ষ্য করে)—পার্শ্ববর্তী দুটি কোষের মধ্যে সংযুক্ত চ্যানেল (connexins প্রোটিন)-গুলোর মাধ্যমে ছোট ছোট সংকেত অণু, যেমন cAMP, ক্যালসিয়াম আয়ন (Ca2+), কোষের মধ্যে স্থানান্তর করতে সক্ষম— প্রোটিন কিংবা ডিএনএ এর মতো কোনো বড় অণু নয়। এটি তাৎক্ষণিক, অত্যন্ত নির্দিষ্ট এবং ব্যক্তিগত যোগাযোগ প্রদান করে, যা হৃদপিণ্ডের পেশি কোষের মতো সংলগ্ন কোষের কার্যকলাপকে সুসংগত করার জন্য অত্যন্ত গুরুত্বপূর্ণ।

বহুকোষীয় জীবেদের মধ্যে রিসেপ্টর প্রোটিনের আবির্ভাব এবং বিবর্তন:

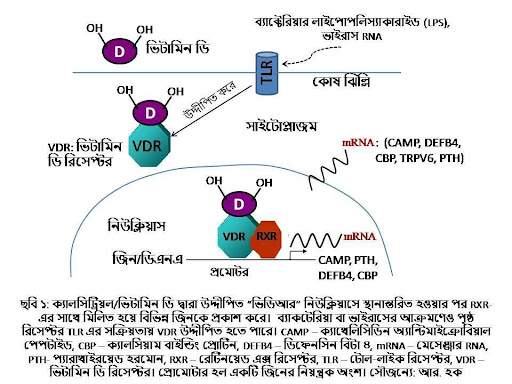
পরিবেশগত উদ্দীপনার প্রতি সাড়া দেওয়ার ক্ষমতা সর্বাধিক করার জন্য, প্রকৃতকোষীয় (ইউক্যারিওট) জীবগুলোতে অন্তঃকোষীয় (কোষের অভ্যন্তরে) এবং ঝিল্লি-আবদ্ধ (কোষ-পৃষ্ঠ) রিসেপ্টর উভয়ই বিবর্তিত হয়েছে এবং এই দুই ধরনের রিসেপ্টর-ই বেশ প্রাচীন। এই দুটো স্বতন্ত্র সিস্টেমের বিবর্তনের ফলে পানি-বিকর্ষী বা হাইড্রোফোবিক অণুগুলো (যেমন স্টেরয়েড হরমোন, নাইট্রিক অক্সাইড, থাইরয়েড হরমোন, ভিটামিন ডি) কোষ-ঝিল্লির মধ্য দিয়ে অবাধে যেতে পারে। তারা সাইটোপ্লাজমে অবস্থিত মুক্ত রিসেপ্টরগুলোর সাথে আবদ্ধ হয়ে প্রায়শই নিউক্লিয়াসে চলে যায় এবং সরাসরি ট্রান্সক্রিপশন ফ্যাক্টর (একধরনের প্রোটিন যা সরাসরি নির্দিষ্ট ডিএনএ ক্রমের সাথে আবদ্ধ হতে পারে) হিসেবে কাজ করে এবং জিনের প্রকাশ নিয়ন্ত্রণ করে (দেখুন ছবি ১)। ব্যাকটেরিয়ার অন্তঃকোষীয় “রেসপন্স রেগুলেটর” বা প্রোটিনগুলো কার্যত এবং কিছুটা হলেও কাঠামোগত মিল প্রদর্শন করলেও তারা ইউক্যারিওটদের নিউক্লিয়ার রিসেপ্টরের কাঠামোগত হোমোলগ নয়। 
অন্যদিকে, পানি-আকর্ষী বা জল-দ্রবণীয় লাইগ্যান্ডগুলো (যেমন, ইন্সুলিন, গ্রোথ ফ্যাক্টর, পেপটাইড হরমোন, নিউরোট্রান্সমিটার, কিছু ওষুধ) ঝিল্লি ভেদ করে যেতে পারে না— তাই তারা কোষ-পৃষ্ঠের রিসেপ্টরগুলোর সাথে আবদ্ধ হয়। প্রকৃতকোষীয় জীবে, কোষ-পৃষ্ঠ (ঝিল্লি) রিসেপ্টরগুলো তিনটি প্রাথমিক গ্ৰুপে বিভক্ত: জি-প্রোটিন-সংযুক্ত রিসেপ্টর (GPCR/জিপিসিআর), আয়ন চ্যানেল-লিঙ্কড রিসেপ্টর এবং এনজাইম-লিঙ্কড রিসেপ্টর (রিসেপ্টর টাইরোসিন কাইনেজ, সাইটোকাইন রিসেপ্টর), যা কোষগুলোকে বাহ্যিক সংকেত সনাক্ত করতে এবং প্রতিক্রিয়া জানাতে সরাসরি জড়িত। এই ট্রান্সমেমব্রেন প্রোটিনগুলো বহির্কোষীয় সংকেতকে কোষীয় প্রতিক্রিয়ায় রূপান্তর করে, যা শারীরবৃত্তীয় প্রক্রিয়াগুলোতে গুরুত্বপূর্ণ ভূমিকা পালন করে। মাঝে মাঝে,  ইন্টিগ্রিন রিসেপ্টরগুলোকে চতুর্থ গ্রুপ হিসেবে শ্রেণিবদ্ধ করা হয়। আমার এই প্রবন্ধে, জি প্রোটিন-কাপল্ড রিসেপ্টর এবং রিসেপ্টর টাইরোসিন কাইনেজ নিয়ে কিছুটা হলেও উদাহরণ দিয়ে বর্ণনা করা হয়েছে। আর, আয়ন চ্যানেল-লিংকড রিসেপ্টর বা লাইগান্ড-গেটেড আয়ন চ্যানেল গ্রুপটি নিয়ে এই বইটিতে পৃথকভাবে বিস্তারিত ব্যাখ্যা করা হয়েছে।

ইউক্যারিওট কোষগুলো তাদের পরিবেশগত উদ্দীপনার প্রতিক্রিয়ায় এবং দেহের অন্যান্য কোষের সাথে মিথস্ক্রিয়া করার জন্য বিভিন্ন পদ্ধতি ব্যবহার করে, যার মধ্যে রয়েছে এন্ডোক্রাইন, প্যারাক্রাইন, অটোক্রাইন এবং সরাসরি জুক্সটাক্রাইন সংকেত, যা আগেই উল্লেখ করা হয়েছে। সংকেতগুলোর মধ্যে রয়েছে আয়ন (Ca2+, K+, Cl), ছোট অণু, নিউরোট্রান্সমিটার, পেপটাইড (যেমন, ইনসুলিন) এবং লিপিড, তবে এগুলোতেই সীমাবদ্ধ নয়। কোষগুলোতে নানাধরনের রিসেপ্টরসম্ভার রয়েছে, যা মোটাদাগে তিনটি ভাগে বিভক্ত— যেমন জি-প্রোটিন-সংযুক্ত রিসেপ্টর (জিপিসিআর), রিসেপ্টর টাইরোসিন কাইনেজ (RTK) এবং আয়ন চ্যানেল (আয়োনোট্রপিক রিসেপ্টর), যা নির্দিষ্ট কোষীয় ফাংশনের জন্য বিবর্তিত। উচ্চ বৈচিত্র্য সত্ত্বেও, প্রাণীদের বিকাশ (developmental) প্রক্রিয়াগুলো প্রায়শই কয়েকটি সংরক্ষিত পথের উপর নির্ভর করে: যেমন হেজহগ (Hedgehog), Wnt (উইংলেস-সম্পর্কিত), TGF-beta (ট্রান্সফরমিং গ্রোথ ফ্যাক্টর-বিটা), রিসেপ্টর টাইরোসিন কাইনেজ, নচ (Notch), JAK/STAT, এবং নিউক্লীয় হরমোন রিসেপ্টর। কিছু ক্ষেত্রে, বিশেষ করে ক্যান্সারের ক্ষেত্রে হিপ্পো (Hippo) সংকেত পথ বা NFκB কখনও কখনও উন্নয়নমূলক পথের প্রতিনিধিত্ব করে। 

ইউক্যারিওট-দের বিবর্তন এবং পরবর্তীতে বহুকোষীত্ব সংকেতবাহী জিনের সংখ্যা বৃদ্ধির মাধ্যমে পরিচালিত হয়েছিল, যা কোষ-আচরণে এক বৃহত্তর নিয়ন্ত্রণের সুযোগ এনে দিয়েছিল। অনেক সংকেত পথ (যেমন Ca2+ সংকেত) ইউক্যারিওট জুড়ে অত্যন্ত সংরক্ষিত, কিন্তু বহুকোষী জীবের মধ্যে এই সংকেতপথটি অন্তঃকোষীয় যোগাযোগে কাজ করার জন্য অভিযোজিত হয়েছে। টিস্যুতে কোষগুলোর মধ্যে সমন্বয়ের প্রয়োজনীয়তার জন্য পরিশীলিত, অন্তঃকোষীয় এবং দীর্ঘ-পরিসরের সংকেত প্রক্রিয়ার প্রয়োজন হয়েছিল। জীব যে বৈচিত্র্যের সাথে মিথস্ক্রিয়া করে তা বিভিন্ন রিসেপ্টর এবং সংকেত ট্রান্সডাকশন প্রক্রিয়ার বিবর্তনকে চালিত করেছে।


বিবর্তনের ইতিহাসে, “GPCR” সংকেত সংবহন এত গুরুত্বপূর্ণ হয়ে উঠলো কেন?

‘জিপিসিআর’ হলো কোষ মেমব্রেন রিসেপ্টরের এক বৈচিত্রময় গ্রুপ, যা কোষ ঝিল্লিজুড়ে সাত বার কুণ্ডলী পাকিয়ে অবস্থান করে, সেই কারণে তাদের পরিচিতিও রয়েছে সাত-ট্রান্সমেমব্রেন রিসেপ্টর হিসেবে। কৌশলী এই ৭-ট্রান্সমেমব্রেন (৭-TM) কাঠামোটি লাইগ্যান্ডের জন্য একটি গভীর, স্থিতিশীল বাঁধাই পকেট তৈরি করে, যা একক পাস কাঠামো রিসেপ্টরের (যেমন RTK) চেয়ে আরও নির্দিষ্ট, উচ্চ-সম্পর্ক এবং বৈচিত্র্যময় মিথস্ক্রিয়ার অনুমতি দেয়। তাদের সংরক্ষিত, দক্ষ ৭-TM কাঠামোকে বজায় রেখে, তারা আলো এবং আয়ন থেকে হরমোন-নিউরোট্রান্সমিটার-লিপিড-প্রোটিন পর্যন্ত বিস্তৃত লাইগ্যান্ড সনাক্ত করতে সক্ষম। সেকারণেই শতকোটি বছর ধরে প্রজন্মের পর প্রজন্ম ধরে প্রকৃতি এই রিসেপ্টর পরিবারকে সমর্থন জুগিয়েছে। ধরা যাক, যদি ৭-TM রিসেপ্টর, অর্থাৎ জি প্রোটিন-কাপল্ড রিসেপ্টর বিবর্তিত না হত, তাহলে জটিল, বহুকোষী জীবনের বিকাশ, বিশেষ করে প্রাণীদের, সম্ভবত ঘটত না অথবা আমূল ভিন্ন রূপ ধারণ করত। আরেকটি বিষয় ভুলে গেলে চলে না যে, দৃষ্টি (রোডোপসিন), গন্ধ এবং স্বাদ সবই ৭-TM রিসেপ্টর দ্বারা মধ্যস্থতা করা হয়। তাই, ৭-TM উদ্ভাবিত না হলে জীবগুলো বেশিরভাগ রাসায়নিক এবং আলোক সংকেতের প্রতি “অন্ধ” এবং “বধির” হত। হয়তো, বিবর্তন RTK বা অন্যান্য সরল ঝিল্লি-রিসেপ্টরের উপর অতিরিক্ত নির্ভর করতো, কিন্তু সংকেত পরিবর্ধন এবং ট্রান্সডাকশনে এগুলো ৭-TM রিসেপ্টরের তুলনায় কম দক্ষ, যা সম্ভবত জীবের আকার এবং জটিলতাকে বেশ সীমাবদ্ধ করতো।

এককোষী ইউক্যারিওট, যেমন খামিরে মাত্র ৩-৫টি ‘জিপিসিআর’ থেকে বহুকোষী প্রাণী (মেটাজোয়া) পর্যন্ত ‘জিপিসিআর’ এর সংখ্যা এবং বৈচিত্র্য ক্রমশ বৃদ্ধি পেয়েছে। বলা যায়, বহুকোষীত্বে রূপান্তরের সময় এর সংখ্যাগত ও বৈচিত্র্যের একটি বড় বিস্ফোরণ ঘটে। জিপিসিআর পরিবারে অন্তর্ভুক্ত অনেকগুলো রিসেপ্টর প্রোটিন রয়েছে, যার প্রকৃত সংখ্যা জানা নেই। তবে, মানবজিনোমে ৮৩১টি জিন সনাক্ত হয়েছে (যা মানব প্রোটিওমের প্রায় ৪ শতাংশ), যা ৮০০ ভিন্ন রকমের জিপিসিআর প্রোটিনের  জন্য সংকেত বহন করে। নিঃসন্দেহে বলা যায়, এটি একটি বৃহত্তম রিসেপ্টর পরিবার, যার মধ্যে প্রায় ৪০০-৫০০টি রিসেপ্টর হলো সংবেদনশীল ফাংশনের (গন্ধ, স্বাদ, আলো) জন্য, বাকি জিপিসিআর-গুলো অন্তর্জাত (হরমোন, পেপটাইড, নিউরোট্রান্সমিটার) লাইগ্যান্ডের রিসেপ্টর হিসেবে কাজ করে। এই রিসেপ্টরগুলো মোটাদাগে ছয়টি শ্রেণিতে বিভক্ত, যার মধ্যে শ্রেণিA (Class A) হচ্ছে রোডপসিন-সদৃশ (Rhodopsin-like) এবং মোট রিসেপ্টরের ৮৫% এই গ্ৰুপে অন্তর্ভুক্ত। আর, যে সব রিসেপ্টরের লাইগ্যান্ড চিহ্নিত হয়নি, তারা হয়েছে এতিম, তাদের বলা হয় অরফ্যান রিসেপ্টর (Orphan receptor)- যেমন GPR21, GPR37, ROR, PXR। 

অন্যদিকে, আরও একটি পৃষ্ঠীয় রিসেপ্টর পরিবারে (রিসেপ্টর টাইরোসিন কাইনেজ/RTK) রয়েছে মাত্র ৫৮টি RTK জিন (মানব জিনোমে)জিপিসিআর-গুলো নিউরোট্রান্সমিশন, হরমোন নিয়ন্ত্রণ এবং রোগ প্রতিরোধ ক্ষমতাসহ বিভিন্ন শারীরবৃত্তীয় প্রক্রিয়া নিয়ন্ত্রণ করে। এই উচ্চ কার্যকরী বৈচিত্র্যের কারণেই ৪০-৫০ শতাংশ আধুনিক ফার্মাসিউটিক্যাল ওষুধ ‘জিপিসিআর’কে লক্ষ্য ক’রে তৈরি হয়েছে।


জিপিসিআর-এর সাথে জি-প্রোটিনের অংশীদারিত্ব বিবর্তনীয় কী সুবিধা প্রদান করেছিল? এই প্রবন্ধে বহুবার জি-প্রোটিনের কথা উল্লেখ করেছি, যেমন জি প্রোটিন-কাপল্ড/সংযুক্ত রিসেপ্টর। কেনই বা এটি এত গুরুত্বপূর্ণ ! জি-প্রোটিন (গুয়ানিন নিউক্লিওটাইড-বাইন্ডিং প্রোটিন) হলো বেশ প্রাচীন একটি সংকেত অণু, যা প্রায় ১.৫ বিলিয়ন (১৫০ কোটি) বছর আগে একটি ছোট্ট অণু “GTPase (Ras)” থেকে উদ্ভূত হয়েছিল, এবং এই জিপিসিআর-টির সাথে জি-প্রোটিনের সংযুক্ত হওয়ার ইতিহাস-ও অনেক প্রাচীন। জি-প্রোটিন অভ্যন্তরীণ কোষ ঝিল্লির সাথে সংযুক্ত একটি আণবিক সুইচ, যা বিভিন্ন ধরনের জিপিসিআর-এর সাথে জুটি বেঁধে অন্তঃকোষীয় লক্ষ্যবস্তুতে বাহ্যিক সংকেত (হরমোন, নিউরোট্রান্সমিটার) প্রেরণ করে। GTP এর সাথে আবদ্ধ হলে এগুলো সক্রিয় থাকে, আর GDP এর সাথে আবদ্ধ হয়ে এটি নিষ্ক্রিয় হয়ে যায়। এই ছোট্ট প্রোটিনটি সংযুক্ত হওয়ায় জিপিসিআর-গুলো প্রাণবন্ত হয়েছে, বলা যায় এই পরিবারটি এক ধরনের সুবিধা ভোগ করেছে। যেমন, পরিবেশের প্রতিটি লাইগ্যান্ডের জন্য একটি নতুন রিসেপ্টর তৈরি করার পরিবর্তে, জীবগুলো দ্রুত বৈচিত্র্যময় জিপিসিআর-পরিবারের সাথে সীমিত জি-প্রোটিন সংযুক্ত করেছে। এই অংশীদারিত্ব প্রাথমিক জীবগুলোকে বিভিন্ন পরিবেশগত সংকেত অনুভব করতে সাহায্য করেছিল। এছাড়া, জি-প্রোটিনের একটি বিশেষ গুণ হলো যে তারা, উত্তেজক জি-প্রোটিন (Gs), সাধারণত ঝিল্লি-আবদ্ধ “অ্যাডিনাইলেট সাইক্লেজ (AC)” এনজাইমকে সক্রিয় ক’রে দ্বিতীয় বার্তাবাহক হিসেবে সাইক্লিক অ্যাডিনোসাইন মনোফসফেট/cAMP (ATP থেকে) সংশ্লেষ করে, যা “প্রোটিন কাইনেজ এ” (PKA)কে উদ্দীপিত ক’রে জিনের প্রকাশ, কোষ বৃদ্ধি এবং নিউরোট্রান্সমিটার নিঃসরণকে নিয়ন্ত্রণ করে। অন্যদিকে, প্রতিরোধক জি-প্রোটিন (Gi) এডিনাইলেট সাইক্লেজকে বাধা দিয়ে cAMP-র উৎপাদন হ্রাস করে। বিকল্পভাবে, জি-প্রোটিন (Gq)  “ফসফোলাইপেজ সি” এনজাইমকে সক্রিয় ক’রে ইনোসিটোল ত্রিসফসফেট (IP3) ও ডায়াসিলগ্লিসেরল (DAG) সংশ্লেষ করে, যা এন্ডোপ্লাজমিক রেটিক্যুলাম থেকে ক্যালসিয়াম (Ca2+) আয়নকে মুক্ত ক’রে এর পরিমাণকে বৃদ্ধি করে। উভয়ক্ষেত্রে, জি-প্রোটিন বহির্কোষীয় ছোট সংকেতকে পরিবর্ধিত ক’রে একটি বৃহৎ, উল্লেখযোগ্য অন্তঃকোষীয় প্রতিক্রিয়া নিশ্চিত করতে সক্ষম। এখানে লক্ষণীয়, জি-প্রোটিনের বিভিন্ন রূপ ব্যবহারের মাধ্যমে কোষাভ্যন্তরে নানা ধরনের সংকেত তৈরি করা সম্ভব হয়েছে। তবে, জি-প্রোটিন আবদ্ধ ছাড়াও কিছু ঝিল্লি-আবদ্ধ রিসেপ্টর স্বাধীনভাবে আবির্ভুত হয়েছে, যেমন রিসেপ্টর টাইরোসিন কাইনেজ (RTK: যেমন, ইন্সুলিন রিসেপ্টর)। এর অন্তঃকোষীয় ডোমেনটি এনজাইম (kinases) হিসেবে কাজ করে। এরা  Ras/MAPK (মাইটোজেন-এক্টিভেটেড প্রোটিন কাইনেজ) বা PI3K (ফসফোইনোসিটাইড ৩-কাইনেজ)এর মতো সংকেতপথ সক্রিয় করার জন্য টাইরোসিন ফসফোরিলেশনের উপর নির্ভর করে, যা বৃদ্ধি, পার্থক্য এবং বিপাকের মতো গুরুত্বপূর্ণ কোষীয় প্রক্রিয়াগুলো মধ্যস্থতা করে। জি প্রোটিন-সংযুক্ত জিপিসিআর ক্যান্সারসহ অনেক রোগের সাথে জড়িত। ফলে, জিপিসিআর একটি গুরুত্বপূর্ণ ড্রাগ টার্গেট হয়ে দেখা দিয়েছে। 

সংকেত সংবহনে দ্বিতীয় বার্তাবাহক অণু এবং “কাইনেজ”প্রোটিনের ভূমিকা
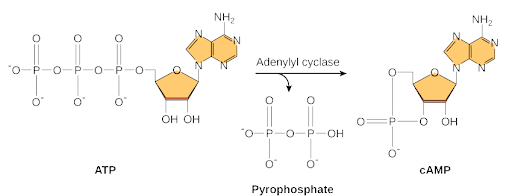
যদিও প্রোটিন সংকেত-সংবহন পথগুলোতে গুরুত্বপূর্ণ, অন্য ধরনের অণুও এতে অংশগ্রহণ করতে পারে। অনেক সংকেতপথের মধ্যে “দ্বিতীয় বার্তাবাহক” নামক ছোট, অ-প্রোটিন অণু জড়িত থাকে, যা একটি লাইগান্ড (“প্রথম বার্তাবাহক”, যেমন হরমোন, নিউরোট্রান্সমিটার) এর রিসেপ্টরের সাথে আবদ্ধ হওয়ার মাধ্যমে শুরু হওয়া একটি সংকেত প্রেরণ করে কোনো একটি নিম্নধারার প্রোটিন বা এনজাইমের কাছে। “দ্বিতীয় বার্তাবাহক অণু” (যেমন cAMP, cGMP, IP, DAG, Ca², NO) সংকেত সংবহনে অত্যন্ত গুরুত্বপূর্ণ, কারণ তারা পৃষ্ঠ-রিসেপ্টর থেকে দুর্বল প্রাথমিক সংকেত (হরমোন-, নিউরোট্রান্সমিটার-সংশ্লিষ্ট)-গুলোকে পরিবর্ধন করে, তারা মধ্যস্থতাকারী অণু হিসেবে কোষের ভিতরে দ্রুত ও ব্যাপকভাবে বার্তা প্রেরণ করে এবং নির্দিষ্ট সংকেত-সংবহনের পরবর্তী (ডাউনস্ট্রিম) নিম্নধারার এনজাইম এবং প্রোটিনগুলোকে সক্রিয় ক’রে নির্দিষ্ট কার্যকরী প্রতিক্রিয়ায় (বিপাক, জিনের প্রকাশ, বৃদ্ধি) রূপান্তর করে। সাইক্লিক এএমপি (cAMP) বিবর্তনের ইতিহাসে একটি প্রাচীন মৌলিক সংকেত অণু, যার উৎপত্তি প্রাচীনতম ব্যাকটেরিয়া থেকে। এটি আদিম প্রোক্যারিওট থেকে ইউক্যারিওট পর্যন্ত জীবনের সকল ক্ষেত্রে উপস্থিত, যা ইঙ্গিত দেয় যে এর উত্থান কোটি কোটি বছর আগে হয়েছিল।

‘জিপিসিআর’, RTK বা অন্যান্য রিসেপ্টরের সাথে লাইগ্যান্ডের (যেমন গ্রোথ ফ্যাক্টর, হরমোন ইত্যাদি)বাঁধনে যে বার্তা দেওয়ার সূচনা হয়, তা “দ্বিতীয় বার্তাবাহী অণু”র দ্বারা বহুগুনে পরিবর্ধিত হয়ে কোষের বিভিন্ন কাইনেজ-সমন্বিত একটি ক্যাসকেডকে সক্রিয় করার মাধ্যমে জিনের প্রকাশ, বৃদ্ধি, পার্থক্য এবং হরমোন ক্রিয়া যেমন বিপাকীয়, জিনগত এবং শারীরবৃত্তীয় প্রতিক্রিয়াগুলো নিয়ন্ত্রণ করে।

প্রোটিন কাইনেজ এ (PKA), প্রোটিন কাইনেজ সি (PKC) এবং প্রোটিন কাইনেজ জি (PKG) — এই তিনটি এনজাইমকে প্রায় ৫০০ ধরনের প্রোটিন কাইনেজের মধ্যে AGC-কাইনেজ পরিবারের প্রতিষ্ঠাতা সদস্য হিসেবে ধরা হয়। এগুলো সেরিন/থ্রিওনিন কাইনেজের একটি প্রধান গোষ্ঠী এবং এই গোষ্ঠীটি আবির্ভুত হয়েছিল ১০০ কোটি (১ বিলিয়ন)রও বেশি বছর আগে, যখন প্রাণের মধ্যে ছিল এককোষী ইউক্যারিওট, ব্যাকটেরিয়া এবং আর্কিয়া। প্রোটিন কাইনেজগুলো সরল প্রোক্যারিওটিক পূর্বপুরুষ (বিশেষ করে মাইটোকন্ড্রীয় এবং ক্লোরোপ্লাস্ট-গুলোর মাধ্যমে) থেকে বিবর্তিত হয়েছে, যার মধ্যে হিস্টিডিন কাইনেজ এবং ব্যাকটেরীয় টাইরোসিন কাইনেজ অন্তর্ভুক্ত, যা পরবর্তীতে অত্যন্ত জটিল, নিয়ন্ত্রিত প্রকৃতকোষীয় প্রোটিন কাইনেজ গ্রুপে পরিণত হয়েছে। এই বিবর্তনে কাইনেজে অর্জিত হয়েছে একটি বা দুইটি সংরক্ষিত অনুঘটক কোর (catalytic core), বিকাশ ঘটেছে ফসফেট দাতা হিসেবে ATP বাঁধাইয়ের স্থান এবং একটি গতিশীল সক্রিয়করণ অংশের, যা এই কাইনেজগুলোকে গুরুত্বপূর্ণ আণবিক সুইচে রূপান্তরিত করেছে।  

বহুকোষীয় প্রাণীদের সংকেত-সংবহনের ক্ষেত্রে, অন্যান্য সংকেত অণু (যেমন ফসফাটেজ, জি-প্রোটিন) বিদ্যমান থাকলেও, প্রোটিন কাইনেজ-কে একটি  গুরুত্বপূর্ণ প্রধান অনুঘটক হিসেবে বিবেচনা করা হয়, কারণ এই এনজাইমগুলো এটিপি/ATP থেকে লক্ষ্য প্রোটিনে ফসফেট গ্রুপ স্থানান্তরের মাধ্যমে (ফসফোরিলেশন) তাৎক্ষণিক সংকেত পরিবর্তনের অনুমতি দেয় এবং লক্ষ্য প্রোটিনের কার্যকারিতা পরিবর্তন করে। কাজেই, ফসফরিলেশন হলো সিগন্যাল ট্রান্সডাকশন এর মূল চালক; আর একথাও বলা যায়, এই আণবিক রিলে দৌড়ে কাইনেজ অণু রানার হিসেবে কাজ করে এবং একটি রাসায়নিক “ব্যাটন” (যেমন, একটি ফসফেট গ্রুপ) পাস করে লাইনে পরবর্তী অণুকে সক্রিয় করে যতক্ষণ না একটি কোষীয় প্রতিক্রিয়া শুরু হয়। এখানে উল্লেখ্য, একটি ফসফেট গ্রুপ (PO4-3) যোগ করলে একটি বৃহৎ ঋণাত্মক চার্জ তৈরি হয়, যার ফলে লক্ষ্য প্রোটিনের কাঠামোগত পরিবর্তন আসে, যা প্রোটিন কার্যকলাপকে পরিবর্তন করে—সক্রিয় বা নিষ্ক্রিয় করে। কাইনেজগুলো বৃহত্তম, সর্বাধিক সংরক্ষিত জিন পরিবারগুলোর মধ্যে একটি, যার মধ্যে ৫০০ টিরও বেশি ভিন্ন মানব প্রোটিন কাইনেজ রয়েছে, যা  কোষে সংঘটিত বেশিরভাগ জৈবিক প্রক্রিয়া (বৃদ্ধি, অ্যাপোপটোসিস এবং বিপাক) নিয়ন্ত্রণ করে। এটি আরও উল্লেখ করার মতো যে, তাদের বৈচিত্র্যময় কার্যকারিতা সত্ত্বেও, কাইনেজ অনুঘটক ডোমেন(একটিভ সাইট)গুলো  খামির (ঈস্ট), অমেরুদণ্ডী প্রাণী এবং মানুষসহ অন্যান্য স্তন্যপায়ী প্রাণীদের মধ্যে অত্যন্ত সংরক্ষিত। যেহেতু এই অঞ্চলগুলো (অনুঘটক ডোমেন) বেঁচে থাকার জন্য অপরিহার্য (যেমন, বিপাক বা সংকেত প্রক্রিয়ায়), তাই বিবর্তনের সময়কালে এগুলো খুব কম পরিবর্তিত হয়েছে।  

বুঝতে ভুল করলে চলে না যে, কাইনেজ  এবং বিপাকীয় এনজাইমগুলো কার্যকারিতার দিক থেকে ভিন্ন: কাইনেজ এনজাইমগুলো হরমোন বা চাপের মতো বাহ্যিক সংকেতের প্রতিক্রিয়ায় আণবিক সুইচ (চালু/বন্ধ) হিসেবে কাজ করে, যা প্রোটিনের (সেরিন, থ্রিওনিন এবং টাইরোসিন অবশিষ্টাংশে) সাথে ফসফেট গ্রুপ সংযুক্ত করে কোষীয় প্রক্রিয়াগুলোকে নিয়ন্ত্রণ করে, যেখানে বিপাকীয় এনজাইম (যেমন হেক্সোকাইনেজ, পাইরুভেট কাইনেজ) ক্যাটাবলিক/অ্যানাবলিক রাসায়নিক বিক্রিয়া পরিচালনা ক’রে শক্তি উৎপাদন, যেমন গ্লুকোজ ভেঙে ফেলা (গ্লাইকোলাইসিস) এবং অণু তৈরি করে। কাইনেজগুলো সংকেতের উপর মনোনিবেশ করে, যখন বিপাকীয় এনজাইমগুলো রাসায়নিক রূপান্তরের উপর মনোনিবেশ করে।

অ্যাড্রেন্যরজিক রিসেপ্টর— জিপিসিআর পরিবারে একটি গুরুত্বপূর্ণ গ্রাহক: জিপিসিআর/GPCR-সংশ্লিষ্ট সংকেত সংবহনটি একটি ক্লাসিক উদাহরণ দিয়ে ব্যাখ্যা করতে চাই। এড্রিনাল গ্রন্থি (ক্রোমাফিন কোষ) থেকে নিঃসৃত জলে-দ্রবণীয় এপিনেফ্রিন/অ্যাড্ৰিন্যালিন হরমোন রক্তপ্রবাহের মধ্য দিয়ে ভ্রমণ ক’রে লক্ষ্য (targeted) কোষগুলোর ঝিল্লিতে নির্দিষ্ট α– এবং β-অ্যাড্রেন্যরজিক রিসেপ্টর (এগুলো জিপিসিআর)-এর সাথে আবদ্ধ হয় এবং নির্দিষ্ট জি-প্রোটিনকে সক্রিয় করে ((ছবি দেখুন)। হরমোন ছাড়া, এপিনেফ্রিন একটি রাসায়নিক বার্তাবাহক বা নিউরোট্রান্সমিটার হিসেবেও উৎপাদিত হয় মস্তিষ্কের অল্প সংখ্যক নিউরন থেকে—তবে, নিউরোট্রান্সমিটার হিসেবে দেহে এর প্রভাব বেশ সীমিত। নিউরোট্রান্সমিটার ও হরমোন উভয় ক্ষেত্রে এপিনেফ্রিন তার প্রভাব সৃষ্টি করে ‘জি প্রোটিন’-যুক্ত আলফা (α1 ও α2)- এবং বিটা-অ্যাড্রেন্যরজিক (β1, β2β3) রিসেপ্টরগুলোর সাথে আবদ্ধ হয়ে। অ্যাড্রেনার্জিক রিসেপ্টরের নানা রূপ (α1, α2, β1- β3) বিবর্তিত হয়েছে, যাতে একই সংকেত অণু – নরএপিনেফ্রিন এবং এপিনেফ্রিন – বিভিন্ন টিস্যু জুড়ে ‘AC/cAMP/PKA’ অন্তঃকোষীয় সংকেত ক্যাসকেডগুলোকে সক্রিয় করে, এক বৈচিত্র্যময়, অত্যন্ত বিশেষায়িত শারীরবৃত্তীয় প্রতিক্রিয়া (পেশি সংকোচন করা, হৃদস্পন্দন বৃদ্ধি করা, বিপাকীয় কার্যকলাপ বৃদ্ধি করা) তৈরি করতে পারে এবং বেঁচে থাকার সর্বোত্তমতা অর্জন করতে পারে। 

এপিনেফ্রিন যখন β2-অ্যাড্রেন্যরজিক রিসেপ্টরের সাথে আবদ্ধ হয়, তখন উত্তেজক-জি-প্রোটিন(Gs)/AC/cAMP/PKA সংকেতপথ কে সক্রিয় ক’রে লক্ষ্য এনজাইমগুলোকে (ফসফোরিলেশনের মাধ্যমে) সক্রিয় করে, যেমন পেশি কোষ ও যকৃত কোষে ফসফোরিলেজ কাইনেজ (গ্লাইকোজেন ভাঙ্গনের জন্য=গ্লাইকোজেনোলাইসিস)কে সক্রিয় করে এবং গ্লাইকোজেন সিন্থেজ-কে বাধা দেয়। অন্যদিকে, β1-অ্যাড্রেন্যরজিক রিসেপ্টরের সাথে আবদ্ধ হয়ে এপিনেফ্রিন কার্ডিয়াক মায়োসাইট এবং সাইনোএট্রিয়াল (SA) নোডে একই সংকেতপথ (Gs/AC/cAMP/PKA)কে সক্রিয় করে, ফলে বেশ কয়েকটি প্রোটিন, যেমন  ভোল্টেজ-গেটেড এল-টাইপ (L-type) ক্যালসিয়াম চ্যানেল এবং রায়ানোডিন রিসেপ্টর ফসফোরিলেশনের মাধ্যমে ক্যালসিয়াম নিঃসরণ বৃদ্ধি করে, ফলে হৃদস্পন্দন এবং হৃদপিণ্ডের পেশির সংকোচন বৃদ্ধি পায়। বিটা-অ্যাড্রেনার্জিক রিসেপ্টর-বিরোধী ওষুধ বা এন্টাগোনিস্ট, যা সাধারণত বিটা-ব্লকার নামে পরিচিত (যেমন এটিনোলল, মেটোপ্রোলল), হৃদস্পন্দন, সংকোচনশীলতা এবং রক্তচাপ কমাতে ব্যবহৃত হয়। এগুলো নরএপিনেফ্রিন এবং এপিনেফ্রিনকে অ্যাড্রেন্যরজিক রিসেপ্টরের সাথে আবদ্ধ হতে বাধা দেয়।
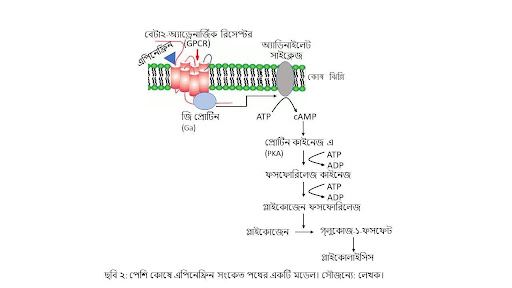
পক্ষান্তরে, এপিনেফ্রিন α2-অ্যাড্রেন্যরজিক রিসেপ্টরের সাথে আবদ্ধ হয়ে প্রতিরোধক জি-প্রোটিন (Gi) অ্যাডিনাইলেট সাইক্লেজকে বাধা দিয়ে cAMP উৎপাদন হ্রাস করে। ফলে, K+-চ্যানেলগুলোর সক্রিয়করণে কোষঝিল্লির হাইপারপোলারাইজেশন (অধিকতর ঋণাত্মক) আবহ সৃষ্টি হয় এবং ভোল্টেজ-নির্ভর Ca2+ চ্যানেলগুলো সরাসরি বাধাগ্রস্ত হয়। ফলশ্রুতিতে, ইন্সুলিন ক্ষরণ বাধাপ্রাপ্ত হয়। রক্তে গ্লুকোজের মাত্রা কমে গেলে (হাইপোগ্লাইসিমিয়া) অগ্ন্যাশয়ের বিটা-কোষে এই প্রতিক্রিয়া দেখা যায়। বিকল্পপথে, এপিনেফ্রিন যদি α1-অ্যাড্রেন্যরজিক রিসেপ্টরের সাথে আবদ্ধ হয়ে জি-প্রোটিন (Gq)কে উদ্দীপিত করার মাধ্যমে ‘ফসফোলাইপেজ সি’ (PLC β1) এনজাইমকে সক্রিয় করে, তাহলে মসৃণ পেশি সংকোচনের জন্য IP3 তৈরির মাধ্যমে অন্তঃকোষীয় ক্যালসিয়াম বৃদ্ধি করে।  যদিও অ্যাড্রেনার্জিক রিসেপ্টর (অ্যাড্রেনোসেপ্টর)গ্রুপটি মানব জিনোমে সমগ্র GPCR পরিবারকে খুব কম শতাংশে (১%) প্রতিনিধিত্ব করে, তবুও তারা সবচেয়ে গুরুত্বপূর্ণ ওষুধ লক্ষ্যবস্তুগুলোর মধ্যে একটি।।

রিসেপ্টর টাইরোসিন কাইনেজ (RTK) — কোষ পৃষ্ঠ-রিসেপ্টরগুলোর একটি অন্যতম শ্রেণি

এগুলো বিস্তার, পার্থক্য এবং বেঁচে থাকার মতো গুরুত্বপূর্ণ কোষীয় প্রক্রিয়াগুলোর মূল নিয়ন্ত্রক হিসেবে কাজ করে। জিপিসিআর এবং RTK-এর গঠন এবং প্রক্রিয়া মৌলিকভাবে ভিন্ন। জিপিসিআর হলো একক-পলিপেপটাইড, সাত-ট্রান্সমেমব্রেন রিসেপ্টর যা সংকেত শুরু করে জি-প্রোটিন সক্রিয় করার মাধ্যমে। বিপরীতে, RTK হলো এনজাইম-সংযুক্ত রিসেপ্টর যা মনোমার হিসেবে বিদ্যমান, তবে লাইগ্যান্ড বাঁধনের পর দুটো মনোমার একত্রিত হয়ে নিম্নধারার (ডাউনস্ট্রিম) সংকেতেপথগুলোকে সক্রিয় করার জন্য তাদের টাইরোসিন অবশিষ্টাংশে (রিসেপ্টরের সাইটোপ্লাজমিক লেজে) তারা নিজেরাই নিজেকে ফসফোরিলেট করে। জিপিসিআর প্রায়শই দ্বিতীয় বার্তাবাহকের মাধ্যমে (যেমন, cAMP) একটি একক পথ (দ্রুত ও স্বল্পস্থায়ী) ট্রিগার করে। কিন্তু, RTK-গুলো একই সাথে অনেকগুলো ভিন্ন সংকেতেপথ সক্রিয় (ধীর ও দীর্ঘস্থায়ী) করতে পারে, যা জটিল কোষ আচরণের জন্য তাদের আরও বহুমুখী করে তোলে। এই দুটি স্বতন্ত্র সিস্টেমের বিবর্তন কোষগুলোকে উপযুক্ত সময়গত এবং কার্যকরী প্রতিক্রিয়াসহ বিভিন্ন ধরনের বহির্কোষীয় তথ্য পরিচালনা করতে দেয়, যা বহুকোষীয়তায় রূপান্তরের জন্য অপরিহার্য ছিল। মানুষের মধ্যে, ৫৮টি ভিন্ন ‘রিসেপ্টর টাইরোসিন কাইনেজ’ বিদ্যমান, যা প্রাথমিকভাবে গ্রোথ ফ্যাক্টর, সাইটোকাইন এবং হরমোন (যেমন ইন্সুলিন)-গুলোর সাথে আবদ্ধ হতে দেখা যায়। RTK-এর বাঁধন লাইগান্ড-নির্দিষ্ট হলেও, অনেক RTK একাধিক, স্বতন্ত্র লাইগান্ড দ্বারা সক্রিয় হতে পারে। উদাহরণস্বরূপ, চারটি EGFR/HER রিসেপ্টর ১৫টি ভিন্ন জিন দ্বারা এনকোড করা লাইগ্যান্ডের একটি পরিবারের প্রতি সাড়া দেয়। কোষ বৃদ্ধিতে এর ভূমিকার কারণে, RTK সংকেতের অনিয়ন্ত্রণ সাধারণত ক্যান্সার, ডায়াবেটিস এবং প্রদাহের সাথে যুক্ত।

এই প্রবন্ধে, RTK পরিবারের একটি উদাহরণ হিসেবে ইন্সুলিন রিসেপ্টর (Ins-R) ও তার সংকেতসংবহনকে ব্যাখ্যা করা হয়েছে (ছবি দেখুন)। Ins-R হলো একধরনের টাইরোসিন কাইনেজ (tyrosine kinase) রিসেপ্টর, যা আলফা (α) ও বিটা (β), সাব-ইউনিট নিয়ে গঠিত। Ins-R-এর সাথে ইনসুলিনের বাঁধন টাইরোসিন কাইনেজ রিসেপ্টরের অটোফসফোরিলেশন বিশেষত্বকে সজাগ করে তোলে। ফলে, সাবইউনিটজুটি একে অপরের টাইরোসিন অবশিষ্টাংশগুলোতে ফসফেট গ্রুপ যুক্ত করে ফেলে। ফসফেট গ্রুপের সংযোজনে ইনসুলিন রিসেপ্টর তার সক্রিয়তা ফিরে পায় ও তাৎক্ষণিক ‘ইনসুলিন রিসেপ্টর সাবস্ট্রেট (IRS-1/2), একধরনের ডকিং প্রোটিনকে ফসফোরিলেশনের মাধ্যমে জাগিয়ে তোলে। IRS-1 বা IRS-2 (ইনসুলিন রিসেপ্টর সাবস্ট্রেট) প্রোটিনগুলো কোষ সংকেতের প্রেক্ষাপটে জি-প্রোটিনের সাথে কার্যকরীভাবে সমান্তরাল, কারণ তারা উভয়ই তাদের নিজ নিজ রিসেপ্টর শ্রেণির জন্য প্রাথমিক ডাউনস্ট্রিম ট্রান্সডিউসার হিসেবে কাজ করে। সক্রিয় IRS-1 সরাসরি ফসফোইনোসিটাইড ৩-কাইনেজ  (PI3K)-এর সাথে আবদ্ধ হয়ে সেটিকেও সক্রিয় করে, যা PIP2 (ফসফ্যাটিডিলইনোসিটল ৪,৫-বিসফসফেট) অণুকে PIP3 (ফসফ্যাটিডিলইনোসিটল ৩,৪,৫-ট্রিসফসফেট) অণুতে রূপান্তরিত করে (ছবি দেখুন)। PIP3 একটি গুরুত্বপূর্ণ সংকেতবাহী অণু, যা পালাক্রমে আরও কয়েকটি কাইনেজ, বিশেষ করে PDPK (ফসফোইনোসিটাইড-ডিপেন্ডেন্ট কাইনেজ)-1 ও প্রোটিন কাইনেজ  বি (protein kinase B, PKB)- এনজাইমকে উজ্জীবিত করে। PDPK-1 হলো একটি মাস্টার কাইনেজ, যা AKT/PKB সক্রিয়করণের জন্য অত্যন্ত গুরুত্বপূর্ণ। প্রসঙ্গতঃ PKB এনজাইম Akt1/2 (সেরিন/থ্রিওনিন কাইনেজ) এনজাইম নামেও অভিহিত। কোষাভ্যন্তরে PKB গ্লুকোজের আগমনকে সহজতর করার জন্য ভেসিকল (vesicle) ও SNARE প্রোটিনের সহযোগিতায় গ্লুকোজ ট্রান্সপোর্টার (GLUT4) বাহককে কোষঝিল্লিতে তার একটি নির্দিষ্টি অবস্থান তৈরি করে দেয়। গ্লুকোজ আকারে যেহেতু বড়, তাই সে ঝিল্লিভেদ্য অণু নয়, তার প্রয়োজন একটি বাহক, অর্থাৎ GLUT4 প্রোটিন। পর্যায়ক্রমে কোষের ভিতর ও বাহিরের মধ্যে একটি গ্লুকোজ ঘনত্বের তারতম্যের সৃষ্টি হয়- ঘনত্ব ভিতরে কম, বাইরে বেশি। অবশেষে, ব্যাপন (diffusion) প্রক্রিয়ার মাধ্যমে গ্লুকোজ সহজেই কোষের অভ্যন্তরে প্রবেশ করে। আর, এই কাজটি আরও সহজ করে দেয় PKB-মধ্যস্থতায় গ্লাইকোজেনেসিস (গ্লাইকোজেন সংশ্লেষণ) প্রক্রিয়া, যা কোষের অভ্যন্তরে গ্লুকোজের ঘনত্ব উল্লেখযোগ্যভাবে হ্রাস করে দেয়। ইন্সুলিনের ক্ষরণ কমে যাওয়া অথবা ইন্সুলিন রিসেপ্টরের কার্যক্ষমতা লাঘব হলে গ্লুকোজ তার গন্তব্যে অর্থাৎ কোষাভ্যন্তরে পৌঁছয় না। ফলে, রক্তে গ্লুকোজের পরিমাণ বেড়ে যায় এবং ডায়াবেটিস বা হাইপারগ্লাইসেমিয়া-সহ উচ্চ রক্তচাপের সৃষ্টি হয়।

PI3K/Akt সংকেতপথের সক্রিয়তার একই সাথে সক্রিয় ইনসুলিন রিসেপ্টর, Grb2/SOS অ্যাডাপ্টার প্রোটিনের সহায়তায় Ras/MAP কাইনেজ, বিশেষ করে Raf-MEK-ERK ক্যাসকেড-কেও সক্রিয় করে। PI3K সংকেতপথটি বিপাকীয় ক্রিয়াগুলো (গ্লুকোজ পরিবহন, গ্লাইকোজেন সংশ্লেষণ) পরিচালনা করে, তবে MAPK পথটি কোষের বৃদ্ধি, পার্থক্য এবং জিনের প্রকাশ (c-Fos, Bcl-2, egr-1 ইত্যাদি)কে নিয়ন্ত্রণ করে (ছবি দেখুন)।  
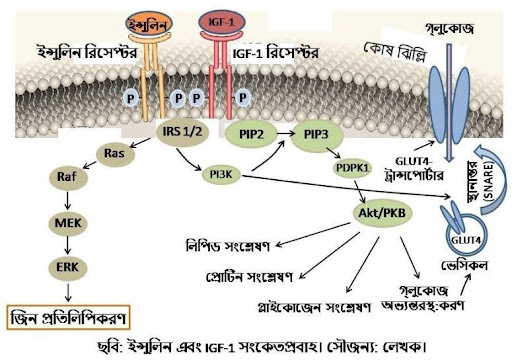
PI3K/Akt সংকেতপথের সক্রিয়তার একই সাথে সক্রিয় ইনসুলিন রিসেপ্টর, Grb2/SOS অ্যাডাপ্টার প্রোটিনের সহায়তায় Ras/MAP কাইনেজ, বিশেষ করে Raf-MEK-ERK ক্যাসকেড-কেও সক্রিয় করে। PI3K সংকেতপথটি বিপাকীয় ক্রিয়াগুলো (গ্লুকোজ পরিবহন, গ্লাইকোজেন সংশ্লেষণ) পরিচালনা করে, তবে MAPK পথটি কোষের বৃদ্ধি, পার্থক্য এবং জিনের প্রকাশ (c-Fos, Bcl-2, egr-1 ইত্যাদি)কে নিয়ন্ত্রণ করে।

শেষকথা

পরিবেশগত উদ্দীপনার ব্যাখ্যা এবং প্রতিক্রিয়া জানাতে জীবনের জন্য সিগন্যাল ট্রান্সডাকশন বা সংকেতসংবহন একটি মৌলিক প্রক্রিয়া হিসেবে আবির্ভূত হয়, যা সরল এককোষী সংবেদনশীল প্রক্রিয়া (যেমন, ব্যাকটেরিয়ার কেমোরিসেপশন) থেকে বহুকোষী জীবের জটিল, সংরক্ষিত পথে বিবর্তিত হয়। এই সংকেত পথগুলো বিকাশ, অনাক্রম্যতা/ইমিউনিটি এবং বিপাকের মতো কোষীয় প্রক্রিয়াগুলোর সমন্বয় সাধনের জন্য অপরিহার্য। কার্যকরীভাবে, এই নেটওয়ার্কগুলোর বিবর্তন — প্রায়শই ম্যাপকাইনেজ (MAPK)-এর মতো সংরক্ষিত ক্যাসকেড জড়িত — যা জীবকে জিনের প্রকাশ এবং আচরণে সুনির্দিষ্ট, দ্রুত পরিবর্তনে বহিরাগত সংকেতগুলোকে অনুবাদ করে অভিযোজিত হতে দেয়। প্রাণীকূলে তাদের উচ্চ সংরক্ষণ থেকে বোঝা যায় যে, ক্রমবর্ধমান জটিলতা সত্ত্বেও, সংকেতের মৌলিক যুক্তি বেঁচে থাকার জন্য প্রয়োজনীয় একটি শক্তিশালী বিবর্তনীয় বৈশিষ্ট্য হিসেবে রয়ে গেছে।   

সাহায্যকারী নোটঃ 

ইনোসিটোল ১,৪,৫-ট্রিসফসফেট (Inositol 1.4.5-trisphosphate, IP3): InsP3 বা IP3 হলো সংকেতবাহী একটি ইনোসিটল-ফসফেট অণু। ফসফোলাইপেজ সি (PLC) এনজাইম দ্বারা কোষঝিল্লিতে অবস্থিত ফসফ্যাটিডিল-ইনোসিটল (phosphatidylinositol, PIP2)-এর হাইড্রোলাইসিস (hydrolysis)-র মাধ্যমে এই অণুটি উদ্ভুত। বিপাকীয় প্রক্রিয়ায় IP3-এর অণুসঙ্গ হিসেবে ডায়াসিলগ্লিসারল (diacylglycerol, DAG)ও তৈরি হয়। IP3 হলো অন্তঃকোষীয় একটি দ্বিতীয় সংকেতবাহী অণু (second messenger molecule), যা জৈবিক কোষে সংকেতসংবহনে (signal transduction) ব্যবহৃত হয়। DAG কোষঝিল্লির সাথে আবদ্ধ থাকে, কিন্তু IP3 কোষীয় জলের সাথে মিশে গিয়ে বার্তাবাহক হিসেবে দ্রুত ছুটে যায় এন্ডোপ্লাজমিক রেটিকুলাম (endoplasmic reticulum, ER)-এ অবস্থিত অপেক্ষমাণ IP3-রিসেপ্টরের টানে। IP3-রিসেপ্টর (IP3R) একটি ক্যালসিয়াম চ্যানেল (calcium channel)ও বটে। তাদের বন্ধনে ER থেকে পর্যাপ্ত পরিমাণ ক্যালসিয়াম সাইটোপ্লাজমে মুক্তি পায়। ক্যালসিয়াম স্বয়ং একটি  অন্তঃকোষীয় সংকেতবাহী পদার্থ। উদাহরণস্বরূপ, সাইটোপ্লাজমে ক্যালসিয়ামের ঘনত্ব বৃদ্ধির ফলে পেশি কোষের সংকোচন ঘটে। এছাড়াও, IP3-DAG প্রোটিন কাইনেজ সি (PKC) সংকেতপ্রবাহকেও সক্রিয় করে।

জি-প্রোটিন (G-protein): জি-প্রোটিন, যা গুয়ানিন নিউক্লিওটাইড-বাইন্ডিং প্রোটিন নামেও পরিচিত, GTPase- নামক এনজাইমের বৃহত্তর গ্রুপে অন্তর্গত। যদিও জি-প্রোটিনের প্রধান কাজ হলো গুয়ানোসিন ট্রাইফসফেট (GTP)কে ভেঙে গুয়ানোসিন ডাইফসফেট (GDP) অণুতে পরিণত করা, কিন্তু এর বাইরেও তারা বিভিন্ন জৈবিক ভূমিকার সাথে যুক্ত। এটি কোষাভ্যন্তরে একটি আণবিক সুইচ হিসেবে কাজ করে, যার মাধ্যমে কোষের বাইরের বিভিন্ন লাইগান্ড-বাহিত উদ্দীপনা রিসেপ্টর-মধ্যস্ততায় সংকেতের মাধ্যমে কোষাভ্যন্তরে প্রেরণ করে। জি প্রোটিনের ক্রিয়াকলাপ নিয়ন্ত্রিত হয় GTP দ্বারা- অর্থ্যাৎ, GTP-র বন্ধনে  জি-প্রোটিন সক্রিয় হয়, আর GDP-এর সাথে আবদ্ধ থাকাকালীন তারা নিষ্ক্রিয় থাকে। আকার ও জটিলতা ভেদে জি-প্রোটিনের দুটি শ্রেণি রয়েছে: ছোট মনোমেরিক জি-প্রোটিন (RAS, যা পৃথকভাবে বর্ণনা করা হয়েছে) ও হেটেরোট্রাইমেরিক জি-প্রোটিন কমপ্লেক্স। জি-প্রোটিন কমপ্লেক্সটি আলফা (Gα), বিটা (Gβ) এবং গামা (Gγ) সাবইউনিট দ্বারা গঠিত। Gα সাবইউনিটের অন্তর্ভুক্ত বেশ কয়েকটি উপসাবইউনিট রয়েছে, যার মধ্যে Gsα (G উদ্দীপক), Giα (G প্রতিরোধক) ও Gq11 উল্লেখযোগ্য। বাহ্যিক সংকেতবাহী লাইগান্ডগুলো (যেমন হরমোন, নিউরোট্রান্সমিটার) কোষের ঝিল্লিজুড়ে থাকা এক ধরনের সর্বাধিক বৈচিত্র্যময় রিসেপ্টর GPCR (G protein-coupled receptor)-এর কোষের বাইরে থাকা একটি ডোমেনের সাথে আবদ্ধ হয়ে রিসেপ্টরের অন্তঃকোষীয় ডোমেন (domain)-সংযুক্ত নির্দিষ্ট জি-প্রোটিনকে সক্রিয় করে। সক্রিয়তায়, Gα অংশটি ‘GPCR-জি প্রোটিন কমপ্লেক্স’ থেকে বিচ্ছিন্ন হয়ে কোষঝিল্লির উপর প্রভাবশালী এনজাইমগুলোকে সক্রিয় করে। অর্থাৎ, সক্রিয় জি-প্রোটিনটি কোষের ঝিল্লিতে একটি এফেক্টর (effector) এনজাইমের (যেমন অ্যাডিনাইলেট সাইক্লেজ, ফসফোলিপেজ সি) সাথে আবদ্ধ হয়, যা অন্তঃকোষীয় দ্বিতীয় ম্যাসেঞ্জার অণু (যেমন, cAMP, ইনোসিটল ১,৪,৫-ট্রাইফসফেট [IP3], ডায়াসিল গ্লিসেরল [DAG]) তৈরি করে, যা সাইটোসোলের কোষীয় প্রতিক্রিয়াগুলোকে উদ্দীপিত করে এবং নিয়ন্ত্রণ করে বিপাকীয় এনজাইম, আয়ন চ্যানেল, ট্রান্সপোর্টার প্রোটিন, ডিএনএ প্রতিলিপিকরণ, গতিশীলতা ও সংকোচনশীলতা, ভ্রূণের বিকাশ, স্মৃতিশক্তি ইত্যাদি।  Gsα উদ্দীপিত করে cAMP-নির্ভর সংকেতসংবহনকে, যা পক্ষান্তরে প্রতিহত হয় Giα উদ্দীপনার মাধ্যমে। আর, Gq11 সক্রিয়তায় উদ্দীপিত হয় IP3 সংকেতসংবহন ব্যবস্থা। আলফ্রেড জি. গিলম্যান এবং মার্টিন রডবেল “জি-প্রোটিন এবং কোষে সংকেত সংবহনে জি-প্রোটিনের ভূমিকা” আবিষ্কারের জন্য ফিজিওলজি বা মেডিসিনে নোবেল পুরস্কার পান ১৯৯৪ সালে।

অরফান রিসেপ্টর (Orphan receptor): এগুলো প্রোটিন এবং গঠনগতভাবে পরিচিত রিসেপ্টরের (সাধারণত জি প্রোটিন-কাপল্ড রিসেপ্টর বা নিউক্লিয়ার রিসেপ্টর) অনুরূপ, যাদের একটি চিহ্নিত অন্তর্জাত (এন্ডোজেনাস) লাইগ্যান্ড নেই। অপরিচিত অংশীদারের কারণে তাদের “অরফান” বা “অনাথ রিসেপ্টর” বলা হয়। প্রায় ৫০টি চিহ্নিত মানব নিউক্লিয়ার রিসেপ্টরের মধ্যে প্রায় ২৫টি হলো অনাথ, এবং এতে স্টেরয়েড হরমোন, থাইরয়েড হরমোন, বিভিন্ন লিপিড এবং অক্সিস্টেরলের রিসেপ্টর অন্তর্ভুক্ত রয়েছে। উদাহরণস্বরূপ, ROR-আল্ফ়া, ROR-গামা, PXR, TLX হলো উল্ল্যেখযোগ্য অরফান রিসেপ্টর, যেগুলো নিউরোবায়োলজি, বিপাকীয় ব্যাধি, রিউমাটয়েড আর্থ্রাইটিস এবং ক্যান্সার থেরাপিতে ওষুধ আবিষ্কারের জন্য প্রতিশ্রুতিশীল লক্ষ্য। এখানে উল্লেখ্য, PPARγ মূলত একটি এতিম রিসেপ্টর ছিল, যা বর্তমানে দত্তক নিউক্লিয়ার রিসেপ্টর হিসেবে পরিচিত। এটি টাইপ২ ডায়াবেটিসের চিকিৎসায় গ্লিটাজোন (TZDs) ওষুধের লক্ষ্যবস্তু হিসেবে পাওয়া গেছে।
মন্তব্য

লেখকতথ্য

প্রফেসর ড. রাশিদুল হক

প্রফেসর ড. রাশিদুল হক: সাবেক উপ-উপাচার্য, বরেন্দ্র বিশ্ববিদ্যালয়, রাজশাহী, এবং সাবেক অধ্যাপক, এমোরি বিশ্ববিদ্যালয়, আটলান্টা, যুক্তরাষ্ট্র, ও প্রাণিবিদ্যা বিভাগ, রাজশাহী বিশ্ববিদ্যালয়, বাংলাদেশ।
জনপ্রিয়

আণবিক ফিসফিসানি থেকেই শুরু হয়েছিল জীবনের যোগাযোগের ভাষা। কোটি বছরের বিবর্তনে সেই সরল সংকেতই রূপ নিয়েছে জটিল, সমন্বিত কোষীয় সিম্ফনিতে।

কোষীয় সংকেতের বিবর্তনশীল গল্প: যখন কোষগুলো বহু ভাষায় কথা বলে

০৯:১৫:২০ অপরাহ্ন, সোমবার, ২৩ ফেব্রুয়ারি ২০২৬

কল্পনা করুন—আপনার শরীরের প্রতিটি কোষ এক একটি ক্ষুদ্র নগরী, যারা অবিরাম বার্তা আদান-প্রদানের মাধ্যমে জীবনকে সচল রাখে; কখনও রাসায়নিক সংকেত, কখনও বৈদ্যুতিক সাড়া, কখনও হরমোনের দূরযাত্রা—এই বহুভাষিক যোগাযোগের বিজ্ঞানই “সিগন্যাল ট্রান্সডাকশন”, যার সূচনা আদিম ব্যাকটেরিয়ার সরল সংবেদন থেকে আর যার পরিণতি মানুষের জটিল কোষীয় নেটওয়ার্কে; এই বিবর্তনশীল আণবিক ভাষার বিস্ময়কর ইতিহাসই প্রফেসর ড. রাশিদুল হক তাঁর প্রবন্ধে তুলে ধরেছেন, যেখানে এককোষী জীবের সহজ সংকেতব্যবস্থা ধীরে ধীরে রূপ নিয়েছে বহুকোষী প্রাণীর সূক্ষ্ম, সমন্বিত ও প্রায় বুদ্ধিমত্তাসম্পন্ন যোগাযোগ ব্যবস্থায়।


সারাংশ: সিগন্যাল ট্রান্সডাকশন বা সংকেতসংবহন, যে পদ্ধতির মাধ্যমে কোষগুলো তাদের পরিবেশকে অনুভব করে এবং প্রতিক্রিয়া জানায়, তা ব্যাকটেরিয়াতে সহজ, স্থানীয় পরিবেশগত পর্যবেক্ষণ থেকে বহুকোষী প্রাণীদের মধ্যে অত্যন্ত জটিল, সমন্বিত যোগাযোগ নেটওয়ার্কে বিবর্তিত হয়েছে। সংকেতসংবহনের বিবর্তনীয় ইতিহাসে এককোষী জীবেদের ভূমিকা ধারণা করা হয় মধ্যপন্থার- তারা এককোষী এবং বহুকোষীয় জীবেদের মধ্যে সেতু রচনা করে। এই বিবর্তনীয় গতিপথটি কোষের আনুগত্য, পার্থক্য এবং আন্তঃকোষীয় যোগাযোগকে সহজতর করার জন্য প্রাচীন সংকেত পথের সংযোজন এবং বিস্তৃতির সাথে জড়িত।


মূল শব্দ: কোষ সংকেত/সিগন্যালিং, যোগাযোগ, ট্রান্সডাকশন, কাইনেজ, জি প্রোটিন, রিসেপ্টর প্রোটিন, বহুকোষীত্ব।


ভূমিকা

“সিগন্যাল ট্রান্সডাকশন” বা “কোষীয় সংকেতসংবহন” কেবল বহুকোষী জীবনের একটি আধুনিক জটিলতা নয়; এটি একটি মৌলিক, প্রাচীন প্রক্রিয়া যা কোটি কোটি বছর ধরে কোষগুলোকে তাদের আশেপাশের পরিবেশ ব্যাখ্যা করতে সক্ষম করেছে। প্রাচীনতম আদিকোষীয় জীব (প্রোক্যারিওট) থেকে শুরু করে মানুষের জটিল কোষ পর্যন্ত, পরিবেশগত সংকেত বা উদ্দীপনা (signal)— যেমন পুষ্টি, আলো বা চাপ— গ্রহণ, প্রক্রিয়াকরণ এবং প্রতিক্রিয়া করার ক্ষমতা বেঁচে থাকার এবং অভিযোজনের জন্য একটি পূর্বশর্ত। কাজেই সংকেত-সংবহন প্রক্রিয়া হলো জৈবিক অস্তিত্বের ভিত্তিপ্রস্তর। যদিও সমস্ত কোষীয় যোগাযোগ রিসেপ্টরগুলোর সক্রিয়করণের উপর নির্ভর করে না, তবে এটি একটি সবচেয়ে সাধারণ প্রক্রিয়া যার মাধ্যমে কোষগুলো তাদের পরিবেশ অনুভব করে বা একে অপরের সাথে যোগাযোগ করে। যেসব সংকেতবাহী অণু (যেমন পুষ্টি, হরমোন, নিউরোট্রান্সমিটার) রিসেপ্টরের সাথে আবদ্ধ হয়, তাদের প্রায়শই লাইগ্যান্ড বলা হয়। যদিও ব্যাকটেরিয়া থেকে মানুষের মধ্যে তিন-পর্যায়ের যে ক্যাসকেড, অর্থাৎ তথ্য গ্রহণ, তার প্রক্রিয়াকরণ এবং প্রতিক্রিয়া, তা উল্লেখযোগ্যভাবে সংরক্ষিত, তবে এই সিগন্যালিং নেটওয়ার্কগুলোর জটিলতা নাটকীয়ভাবে বিকশিত হয়েছে। বহুকোষীত্বের উত্থানের ফলে ব্যাকটেরিয়ায় ব্যবহৃত “দ্বি-উপাদান” (হিস্টিডিন কাইনেজ রিসেপ্টর এবং রেসপন্স রেগুলেটর) ব্যবস্থার মতো সরল, এককোষী পুষ্টি সংবেদন থেকে পরিশীলিত, সমন্বিত এবং বিভাগীয় নেটওয়ার্কগুলোতে রূপান্তর প্রয়োজন হয়েছিল, যা কোষের ভাগ্য, বিকাশ এবং টিস্যু হোমিওস্ট্যাসিস নিয়ন্ত্রণ করে। প্রোটিন কাইনেজ এবং জি-প্রোটিন-সংযুক্ত রিসেপ্টরগুলোয় বিবর্তনীয় চাপ, ডুপ্লিকেশন এবং ডোমেন বৈচিত্র্যের মাধ্যমে, মৌলিক পরিবেশগত স্বীকৃতি ব্যবস্থাগুলোকে জটিল নিয়ন্ত্রক সংযোগে রূপান্তরিত করেছে। এই প্রবন্ধে, কাছের বা দূরের কোষগুলো একে অপরের সাথে কীভাবে যোগাযোগ করে, তার মৌলিক নীতিগুলো বিবর্তনের আলোকে আলোচিত হয়েছে, সাথে বিভিন্ন ধরনের স্বল্প-পাল্লার এবং দীর্ঘ-পাল্লার সংকেতসমূহ বিবেচিত হয়েছে।

ব্যাকটেরিয়ার সংকেত সংবহন কী

ব্যাকটেরিয়ায় সিগন্যাল ট্রান্সডাকশন বা সংকেতসংবহন পদ্ধতি দুইটি প্রাথমিক উপাদান নিয়ে গঠিত— ‘হিস্টিডিন কাইনেজ (HK) রিসেপ্টর’ এবং ‘রেসপন্স রেগুলেটর’— যা তাদেরকে পরিবেশগত পরিবর্তনগুলো অনুভব করতে এবং মানিয়ে নিতে সাহায্য করে।  ব্যাকটেরীয় ‘হিস্টিডিন কাইনেজ রিসেপ্টর’ সাধারণত একটি ঝিল্লি-আবদ্ধ প্রোটিন, যা সেন্সর হিসেবে বহিঃকোষীয় উদ্দীপনা সনাক্ত করে (যেমন pH বা পুষ্টি) এবং তার নিজস্ব হিস্টিডিন অবশিষ্টাংশ  নিজেই ফসফোরিলেট করে। সাইটোপ্লাজমে অবস্থিত  ‘রেসপন্স রেগুলেটর’ নামে প্রোটিনটি HK থেকে ফসফেট গ্রহণ করে সক্রিয় হয়,  যা জিনের প্রকাশ পরিবর্তন করার জন্য ট্রান্সক্রিপশন ফ্যাক্টর হিসেবে কাজ করতে সক্ষম, অথবা কেমোট্যাক্সিসে একটি এনজাইম হিসেবে কাজ করতে সক্ষম করে। এই ফসফোরিলেশন-চালিত সিস্টেম ব্যাকটেরিয়াকে ভিরুলেন্স, বায়োফিল্ম উন্নয়ন এবং অ্যান্টিবায়োটিক প্রতিরোধের মতো গুরুত্বপূর্ণ প্রক্রিয়াগুলোকে নিয়ন্ত্রণ করতে দেয়।

এককোষী এবং বহুকোষীয় জীবেদের মধ্যে সেতু রচনা

এককোষী জীবগুলো (ইউক্যারিওট) হলো “আণবিক জীবাশ্ম”, যাদের প্রাচীন সংকেতপথ আদিকোষীয়-সংবেদন এবং বহুকোষীয় (প্রাণী)-সংকেতের মধ্যে ব্যবধান পূরণ করে। এই জীবগুলো, বিশেষ করে কোয়ানোফ্ল্যাজেলেট (Choanoflagellates) জলজ জীবেদের, প্রাণীদের নিকটতম জীবিত আত্মীয়, এমনসব জিনগত বৈশিষ্ট্য ধারণ করে, যার মধ্যে মূল বহুকোষীয় জীবেদের সংকেতসংবহনের উপাদানগুলোর সমজাতীয় উপাদান রয়েছে – যেমন নচ (Notch), ডেল্টা এবং রিসেপ্টর টাইরোসিন কাইনেজ (RTK) – যা বহুকোষী প্রাণীর বিবর্তনের আগেই বিদ্যমান ছিল। এছাড়া, তাদের মধ্যে ক্যাডারিন (Cadherin) জিনের এক বৈচিত্রময় ভান্ডারও রয়েছে, যা শুধুমাত্র বহুকোষী প্রাণীদের কোষ-থেকে-কোষ আনুগত্য ও আসঞ্জনের জন্য বিশেষ বৈশিষ্ট্য বলে মনে করা হতো।

তবে, ব্যাকটেরিয়ার তুলনায় অ্যামিবার মতো এককোষী প্রকৃতকোষীয় (ইউক্যারিওট) জীবের মধ্যে সংকেত সংবহন পদ্ধতি আরও উন্নত এবং জটিল। অ্যামিবাতে, বিশেষ করে ডিক্টিওস্টেলিয়াম ডিসকোইডিয়াম এবং এন্টামিবা হিস্টোলাইটিকা-তে, “কোষীয় সংকেত”, আচরণ, গতিশীলতা এবং পার্থক্য নিয়ন্ত্রণের জন্য জি-প্রোটিন-সংযুক্ত রিসেপ্টর (যা ব্যাকটেরিয়ায় উদ্ভব হয়নি), cAMP-বাহিত সংকেত, ঝিল্লি-আবদ্ধ কাইনেজ এবং ফসফোরিলেশন ক্যাসকেডের উপর ব্যাপকভাবে নির্ভর করে, যার অনুরূপ মানব ইমিউন সিস্টেমের ম্যাক্রোফেজে (যা  অ্যামিবাগুলোর উত্তরসূরি হিসেবে বিবেচিত) পাওয়া যায়। এই জীবগুলো পরিবেশগত সংকেত – যেমন খাদ্যের প্রাপ্যতা, কোষের ঘনত্ব এবং চাপ – কেমোট্যাক্সিস এবং এনসিস্টেশন/Encystation (গতিশীল, সক্রিয় অবস্থা থেকে সিস্টে রূপান্তর) নিয়ন্ত্রণকারী পথগুলো শুরু করার জন্য পৃষ্ঠ রিসেপ্টর ব্যবহার করে অনুভব করে। এই প্রক্রিয়াগুলো অ্যামিবা জীবেদের পরিবেশগত পরিবর্তনগুলো (পুষ্টি, চাপ) অনুভব করতে বা প্রতিবেশিদের সাথে যোগাযোগ করতে দেয়।

কোষীয় সংকেত পথের বৈচিত্র্য এবং বিবর্তন

দূরত্ব বিবেচনায় সংকেত সংবহনের ধরন: একটি জটিল, বহুকোষী পরিবেশের মধ্যে গতি, নির্দিষ্টতা এবং সমন্বয়ের প্রয়োজনীয়তার ভারসাম্য বজায় রাখার জন্য কোষগুলো দূরত্বের উপর ভিত্তি করে বিভিন্ন ধরনের সংকেত প্রেরণের পদ্ধতি তৈরি করেছে। এই বিশেষ প্রক্রিয়াগুলো কোষগুলোকে নিকটবর্তী প্রতিবেশি, দূরবর্তী অঙ্গ বা নিজেদের সাথে কার্যকরভাবে যোগাযোগ করতে দেয়, যা পুরো শরীরের হোমিওস্ট্যাসিস/ভারসাম্যতা নিশ্চিত করে।

সংকেত সংবহনের দূরত্ব বিবেচনায় বহুকোষী জীবের মধ্যে রাসায়নিক সংকেতের চারটি মৌলিক বিভাগ রয়েছে: ১) প্যারাক্রাইন (একটি কোষ নিকটবর্তী একটি কোষকে লক্ষ্য করে)—উদাহরণস্বরূপ, নিউরোট্রান্সমিটারগুলো স্নায়ু কোষের মধ্যে সিন্যাপ্সের মাধ্যমে পরবর্তী স্নায়ুকোষে (পোস্টসিন্যাপ্টিক) সংকেত স্থানান্তর করে; ২) এন্ডোক্রাইন —বিভিন্ন গ্রন্থি থেকে নিঃসৃত হরমোনগুলো রক্তপ্রবাহের মাধ্যমে দূরবর্তী কোষকে লক্ষ্য করে; ৩) অটোক্রাইন (একটি কোষ নিজেকে লক্ষ্য করে)— উদাহরণস্বরূপ, যদি একটি কোষ ভাইরাস দ্বারা সংক্রামিত হয়, কোষটি তার নিজের মৃত্যুর জন্য সংকেত দিতে পারে, প্রক্রিয়ায় ভাইরাসটিকে হত্যা করা হয়; এবং ৪) জাক্সটাক্রাইন (Juxtacrine)/সরাসরি সংকেত (একটি কোষ গ্যাপ জংশন দ্বারা সংলগ্ন কোষকে লক্ষ্য করে)—পার্শ্ববর্তী দুটি কোষের মধ্যে সংযুক্ত চ্যানেল (connexins প্রোটিন)-গুলোর মাধ্যমে ছোট ছোট সংকেত অণু, যেমন cAMP, ক্যালসিয়াম আয়ন (Ca2+), কোষের মধ্যে স্থানান্তর করতে সক্ষম— প্রোটিন কিংবা ডিএনএ এর মতো কোনো বড় অণু নয়। এটি তাৎক্ষণিক, অত্যন্ত নির্দিষ্ট এবং ব্যক্তিগত যোগাযোগ প্রদান করে, যা হৃদপিণ্ডের পেশি কোষের মতো সংলগ্ন কোষের কার্যকলাপকে সুসংগত করার জন্য অত্যন্ত গুরুত্বপূর্ণ।

বহুকোষীয় জীবেদের মধ্যে রিসেপ্টর প্রোটিনের আবির্ভাব এবং বিবর্তন:

পরিবেশগত উদ্দীপনার প্রতি সাড়া দেওয়ার ক্ষমতা সর্বাধিক করার জন্য, প্রকৃতকোষীয় (ইউক্যারিওট) জীবগুলোতে অন্তঃকোষীয় (কোষের অভ্যন্তরে) এবং ঝিল্লি-আবদ্ধ (কোষ-পৃষ্ঠ) রিসেপ্টর উভয়ই বিবর্তিত হয়েছে এবং এই দুই ধরনের রিসেপ্টর-ই বেশ প্রাচীন। এই দুটো স্বতন্ত্র সিস্টেমের বিবর্তনের ফলে পানি-বিকর্ষী বা হাইড্রোফোবিক অণুগুলো (যেমন স্টেরয়েড হরমোন, নাইট্রিক অক্সাইড, থাইরয়েড হরমোন, ভিটামিন ডি) কোষ-ঝিল্লির মধ্য দিয়ে অবাধে যেতে পারে। তারা সাইটোপ্লাজমে অবস্থিত মুক্ত রিসেপ্টরগুলোর সাথে আবদ্ধ হয়ে প্রায়শই নিউক্লিয়াসে চলে যায় এবং সরাসরি ট্রান্সক্রিপশন ফ্যাক্টর (একধরনের প্রোটিন যা সরাসরি নির্দিষ্ট ডিএনএ ক্রমের সাথে আবদ্ধ হতে পারে) হিসেবে কাজ করে এবং জিনের প্রকাশ নিয়ন্ত্রণ করে (দেখুন ছবি ১)। ব্যাকটেরিয়ার অন্তঃকোষীয় “রেসপন্স রেগুলেটর” বা প্রোটিনগুলো কার্যত এবং কিছুটা হলেও কাঠামোগত মিল প্রদর্শন করলেও তারা ইউক্যারিওটদের নিউক্লিয়ার রিসেপ্টরের কাঠামোগত হোমোলগ নয়। 

অন্যদিকে, পানি-আকর্ষী বা জল-দ্রবণীয় লাইগ্যান্ডগুলো (যেমন, ইন্সুলিন, গ্রোথ ফ্যাক্টর, পেপটাইড হরমোন, নিউরোট্রান্সমিটার, কিছু ওষুধ) ঝিল্লি ভেদ করে যেতে পারে না— তাই তারা কোষ-পৃষ্ঠের রিসেপ্টরগুলোর সাথে আবদ্ধ হয়। প্রকৃতকোষীয় জীবে, কোষ-পৃষ্ঠ (ঝিল্লি) রিসেপ্টরগুলো তিনটি প্রাথমিক গ্ৰুপে বিভক্ত: জি-প্রোটিন-সংযুক্ত রিসেপ্টর (GPCR/জিপিসিআর), আয়ন চ্যানেল-লিঙ্কড রিসেপ্টর এবং এনজাইম-লিঙ্কড রিসেপ্টর (রিসেপ্টর টাইরোসিন কাইনেজ, সাইটোকাইন রিসেপ্টর), যা কোষগুলোকে বাহ্যিক সংকেত সনাক্ত করতে এবং প্রতিক্রিয়া জানাতে সরাসরি জড়িত। এই ট্রান্সমেমব্রেন প্রোটিনগুলো বহির্কোষীয় সংকেতকে কোষীয় প্রতিক্রিয়ায় রূপান্তর করে, যা শারীরবৃত্তীয় প্রক্রিয়াগুলোতে গুরুত্বপূর্ণ ভূমিকা পালন করে। মাঝে মাঝে,  ইন্টিগ্রিন রিসেপ্টরগুলোকে চতুর্থ গ্রুপ হিসেবে শ্রেণিবদ্ধ করা হয়। আমার এই প্রবন্ধে, জি প্রোটিন-কাপল্ড রিসেপ্টর এবং রিসেপ্টর টাইরোসিন কাইনেজ নিয়ে কিছুটা হলেও উদাহরণ দিয়ে বর্ণনা করা হয়েছে। আর, আয়ন চ্যানেল-লিংকড রিসেপ্টর বা লাইগান্ড-গেটেড আয়ন চ্যানেল গ্রুপটি নিয়ে এই বইটিতে পৃথকভাবে বিস্তারিত ব্যাখ্যা করা হয়েছে।

ইউক্যারিওট কোষগুলো তাদের পরিবেশগত উদ্দীপনার প্রতিক্রিয়ায় এবং দেহের অন্যান্য কোষের সাথে মিথস্ক্রিয়া করার জন্য বিভিন্ন পদ্ধতি ব্যবহার করে, যার মধ্যে রয়েছে এন্ডোক্রাইন, প্যারাক্রাইন, অটোক্রাইন এবং সরাসরি জুক্সটাক্রাইন সংকেত, যা আগেই উল্লেখ করা হয়েছে। সংকেতগুলোর মধ্যে রয়েছে আয়ন (Ca2+, K+, Cl), ছোট অণু, নিউরোট্রান্সমিটার, পেপটাইড (যেমন, ইনসুলিন) এবং লিপিড, তবে এগুলোতেই সীমাবদ্ধ নয়। কোষগুলোতে নানাধরনের রিসেপ্টরসম্ভার রয়েছে, যা মোটাদাগে তিনটি ভাগে বিভক্ত— যেমন জি-প্রোটিন-সংযুক্ত রিসেপ্টর (জিপিসিআর), রিসেপ্টর টাইরোসিন কাইনেজ (RTK) এবং আয়ন চ্যানেল (আয়োনোট্রপিক রিসেপ্টর), যা নির্দিষ্ট কোষীয় ফাংশনের জন্য বিবর্তিত। উচ্চ বৈচিত্র্য সত্ত্বেও, প্রাণীদের বিকাশ (developmental) প্রক্রিয়াগুলো প্রায়শই কয়েকটি সংরক্ষিত পথের উপর নির্ভর করে: যেমন হেজহগ (Hedgehog), Wnt (উইংলেস-সম্পর্কিত), TGF-beta (ট্রান্সফরমিং গ্রোথ ফ্যাক্টর-বিটা), রিসেপ্টর টাইরোসিন কাইনেজ, নচ (Notch), JAK/STAT, এবং নিউক্লীয় হরমোন রিসেপ্টর। কিছু ক্ষেত্রে, বিশেষ করে ক্যান্সারের ক্ষেত্রে হিপ্পো (Hippo) সংকেত পথ বা NFκB কখনও কখনও উন্নয়নমূলক পথের প্রতিনিধিত্ব করে। 

ইউক্যারিওট-দের বিবর্তন এবং পরবর্তীতে বহুকোষীত্ব সংকেতবাহী জিনের সংখ্যা বৃদ্ধির মাধ্যমে পরিচালিত হয়েছিল, যা কোষ-আচরণে এক বৃহত্তর নিয়ন্ত্রণের সুযোগ এনে দিয়েছিল। অনেক সংকেত পথ (যেমন Ca2+ সংকেত) ইউক্যারিওট জুড়ে অত্যন্ত সংরক্ষিত, কিন্তু বহুকোষী জীবের মধ্যে এই সংকেতপথটি অন্তঃকোষীয় যোগাযোগে কাজ করার জন্য অভিযোজিত হয়েছে। টিস্যুতে কোষগুলোর মধ্যে সমন্বয়ের প্রয়োজনীয়তার জন্য পরিশীলিত, অন্তঃকোষীয় এবং দীর্ঘ-পরিসরের সংকেত প্রক্রিয়ার প্রয়োজন হয়েছিল। জীব যে বৈচিত্র্যের সাথে মিথস্ক্রিয়া করে তা বিভিন্ন রিসেপ্টর এবং সংকেত ট্রান্সডাকশন প্রক্রিয়ার বিবর্তনকে চালিত করেছে।


বিবর্তনের ইতিহাসে, “GPCR” সংকেত সংবহন এত গুরুত্বপূর্ণ হয়ে উঠলো কেন?

‘জিপিসিআর’ হলো কোষ মেমব্রেন রিসেপ্টরের এক বৈচিত্রময় গ্রুপ, যা কোষ ঝিল্লিজুড়ে সাত বার কুণ্ডলী পাকিয়ে অবস্থান করে, সেই কারণে তাদের পরিচিতিও রয়েছে সাত-ট্রান্সমেমব্রেন রিসেপ্টর হিসেবে। কৌশলী এই ৭-ট্রান্সমেমব্রেন (৭-TM) কাঠামোটি লাইগ্যান্ডের জন্য একটি গভীর, স্থিতিশীল বাঁধাই পকেট তৈরি করে, যা একক পাস কাঠামো রিসেপ্টরের (যেমন RTK) চেয়ে আরও নির্দিষ্ট, উচ্চ-সম্পর্ক এবং বৈচিত্র্যময় মিথস্ক্রিয়ার অনুমতি দেয়। তাদের সংরক্ষিত, দক্ষ ৭-TM কাঠামোকে বজায় রেখে, তারা আলো এবং আয়ন থেকে হরমোন-নিউরোট্রান্সমিটার-লিপিড-প্রোটিন পর্যন্ত বিস্তৃত লাইগ্যান্ড সনাক্ত করতে সক্ষম। সেকারণেই শতকোটি বছর ধরে প্রজন্মের পর প্রজন্ম ধরে প্রকৃতি এই রিসেপ্টর পরিবারকে সমর্থন জুগিয়েছে। ধরা যাক, যদি ৭-TM রিসেপ্টর, অর্থাৎ জি প্রোটিন-কাপল্ড রিসেপ্টর বিবর্তিত না হত, তাহলে জটিল, বহুকোষী জীবনের বিকাশ, বিশেষ করে প্রাণীদের, সম্ভবত ঘটত না অথবা আমূল ভিন্ন রূপ ধারণ করত। আরেকটি বিষয় ভুলে গেলে চলে না যে, দৃষ্টি (রোডোপসিন), গন্ধ এবং স্বাদ সবই ৭-TM রিসেপ্টর দ্বারা মধ্যস্থতা করা হয়। তাই, ৭-TM উদ্ভাবিত না হলে জীবগুলো বেশিরভাগ রাসায়নিক এবং আলোক সংকেতের প্রতি “অন্ধ” এবং “বধির” হত। হয়তো, বিবর্তন RTK বা অন্যান্য সরল ঝিল্লি-রিসেপ্টরের উপর অতিরিক্ত নির্ভর করতো, কিন্তু সংকেত পরিবর্ধন এবং ট্রান্সডাকশনে এগুলো ৭-TM রিসেপ্টরের তুলনায় কম দক্ষ, যা সম্ভবত জীবের আকার এবং জটিলতাকে বেশ সীমাবদ্ধ করতো।

এককোষী ইউক্যারিওট, যেমন খামিরে মাত্র ৩-৫টি ‘জিপিসিআর’ থেকে বহুকোষী প্রাণী (মেটাজোয়া) পর্যন্ত ‘জিপিসিআর’ এর সংখ্যা এবং বৈচিত্র্য ক্রমশ বৃদ্ধি পেয়েছে। বলা যায়, বহুকোষীত্বে রূপান্তরের সময় এর সংখ্যাগত ও বৈচিত্র্যের একটি বড় বিস্ফোরণ ঘটে। জিপিসিআর পরিবারে অন্তর্ভুক্ত অনেকগুলো রিসেপ্টর প্রোটিন রয়েছে, যার প্রকৃত সংখ্যা জানা নেই। তবে, মানবজিনোমে ৮৩১টি জিন সনাক্ত হয়েছে (যা মানব প্রোটিওমের প্রায় ৪ শতাংশ), যা ৮০০ ভিন্ন রকমের জিপিসিআর প্রোটিনের  জন্য সংকেত বহন করে। নিঃসন্দেহে বলা যায়, এটি একটি বৃহত্তম রিসেপ্টর পরিবার, যার মধ্যে প্রায় ৪০০-৫০০টি রিসেপ্টর হলো সংবেদনশীল ফাংশনের (গন্ধ, স্বাদ, আলো) জন্য, বাকি জিপিসিআর-গুলো অন্তর্জাত (হরমোন, পেপটাইড, নিউরোট্রান্সমিটার) লাইগ্যান্ডের রিসেপ্টর হিসেবে কাজ করে। এই রিসেপ্টরগুলো মোটাদাগে ছয়টি শ্রেণিতে বিভক্ত, যার মধ্যে শ্রেণিA (Class A) হচ্ছে রোডপসিন-সদৃশ (Rhodopsin-like) এবং মোট রিসেপ্টরের ৮৫% এই গ্ৰুপে অন্তর্ভুক্ত। আর, যে সব রিসেপ্টরের লাইগ্যান্ড চিহ্নিত হয়নি, তারা হয়েছে এতিম, তাদের বলা হয় অরফ্যান রিসেপ্টর (Orphan receptor)- যেমন GPR21, GPR37, ROR, PXR। 

অন্যদিকে, আরও একটি পৃষ্ঠীয় রিসেপ্টর পরিবারে (রিসেপ্টর টাইরোসিন কাইনেজ/RTK) রয়েছে মাত্র ৫৮টি RTK জিন (মানব জিনোমে)জিপিসিআর-গুলো নিউরোট্রান্সমিশন, হরমোন নিয়ন্ত্রণ এবং রোগ প্রতিরোধ ক্ষমতাসহ বিভিন্ন শারীরবৃত্তীয় প্রক্রিয়া নিয়ন্ত্রণ করে। এই উচ্চ কার্যকরী বৈচিত্র্যের কারণেই ৪০-৫০ শতাংশ আধুনিক ফার্মাসিউটিক্যাল ওষুধ ‘জিপিসিআর’কে লক্ষ্য ক’রে তৈরি হয়েছে।


জিপিসিআর-এর সাথে জি-প্রোটিনের অংশীদারিত্ব বিবর্তনীয় কী সুবিধা প্রদান করেছিল? এই প্রবন্ধে বহুবার জি-প্রোটিনের কথা উল্লেখ করেছি, যেমন জি প্রোটিন-কাপল্ড/সংযুক্ত রিসেপ্টর। কেনই বা এটি এত গুরুত্বপূর্ণ ! জি-প্রোটিন (গুয়ানিন নিউক্লিওটাইড-বাইন্ডিং প্রোটিন) হলো বেশ প্রাচীন একটি সংকেত অণু, যা প্রায় ১.৫ বিলিয়ন (১৫০ কোটি) বছর আগে একটি ছোট্ট অণু “GTPase (Ras)” থেকে উদ্ভূত হয়েছিল, এবং এই জিপিসিআর-টির সাথে জি-প্রোটিনের সংযুক্ত হওয়ার ইতিহাস-ও অনেক প্রাচীন। জি-প্রোটিন অভ্যন্তরীণ কোষ ঝিল্লির সাথে সংযুক্ত একটি আণবিক সুইচ, যা বিভিন্ন ধরনের জিপিসিআর-এর সাথে জুটি বেঁধে অন্তঃকোষীয় লক্ষ্যবস্তুতে বাহ্যিক সংকেত (হরমোন, নিউরোট্রান্সমিটার) প্রেরণ করে। GTP এর সাথে আবদ্ধ হলে এগুলো সক্রিয় থাকে, আর GDP এর সাথে আবদ্ধ হয়ে এটি নিষ্ক্রিয় হয়ে যায়। এই ছোট্ট প্রোটিনটি সংযুক্ত হওয়ায় জিপিসিআর-গুলো প্রাণবন্ত হয়েছে, বলা যায় এই পরিবারটি এক ধরনের সুবিধা ভোগ করেছে। যেমন, পরিবেশের প্রতিটি লাইগ্যান্ডের জন্য একটি নতুন রিসেপ্টর তৈরি করার পরিবর্তে, জীবগুলো দ্রুত বৈচিত্র্যময় জিপিসিআর-পরিবারের সাথে সীমিত জি-প্রোটিন সংযুক্ত করেছে। এই অংশীদারিত্ব প্রাথমিক জীবগুলোকে বিভিন্ন পরিবেশগত সংকেত অনুভব করতে সাহায্য করেছিল। এছাড়া, জি-প্রোটিনের একটি বিশেষ গুণ হলো যে তারা, উত্তেজক জি-প্রোটিন (Gs), সাধারণত ঝিল্লি-আবদ্ধ “অ্যাডিনাইলেট সাইক্লেজ (AC)” এনজাইমকে সক্রিয় ক’রে দ্বিতীয় বার্তাবাহক হিসেবে সাইক্লিক অ্যাডিনোসাইন মনোফসফেট/cAMP (ATP থেকে) সংশ্লেষ করে, যা “প্রোটিন কাইনেজ এ” (PKA)কে উদ্দীপিত ক’রে জিনের প্রকাশ, কোষ বৃদ্ধি এবং নিউরোট্রান্সমিটার নিঃসরণকে নিয়ন্ত্রণ করে। অন্যদিকে, প্রতিরোধক জি-প্রোটিন (Gi) এডিনাইলেট সাইক্লেজকে বাধা দিয়ে cAMP-র উৎপাদন হ্রাস করে। বিকল্পভাবে, জি-প্রোটিন (Gq)  “ফসফোলাইপেজ সি” এনজাইমকে সক্রিয় ক’রে ইনোসিটোল ত্রিসফসফেট (IP3) ও ডায়াসিলগ্লিসেরল (DAG) সংশ্লেষ করে, যা এন্ডোপ্লাজমিক রেটিক্যুলাম থেকে ক্যালসিয়াম (Ca2+) আয়নকে মুক্ত ক’রে এর পরিমাণকে বৃদ্ধি করে। উভয়ক্ষেত্রে, জি-প্রোটিন বহির্কোষীয় ছোট সংকেতকে পরিবর্ধিত ক’রে একটি বৃহৎ, উল্লেখযোগ্য অন্তঃকোষীয় প্রতিক্রিয়া নিশ্চিত করতে সক্ষম। এখানে লক্ষণীয়, জি-প্রোটিনের বিভিন্ন রূপ ব্যবহারের মাধ্যমে কোষাভ্যন্তরে নানা ধরনের সংকেত তৈরি করা সম্ভব হয়েছে। তবে, জি-প্রোটিন আবদ্ধ ছাড়াও কিছু ঝিল্লি-আবদ্ধ রিসেপ্টর স্বাধীনভাবে আবির্ভুত হয়েছে, যেমন রিসেপ্টর টাইরোসিন কাইনেজ (RTK: যেমন, ইন্সুলিন রিসেপ্টর)। এর অন্তঃকোষীয় ডোমেনটি এনজাইম (kinases) হিসেবে কাজ করে। এরা  Ras/MAPK (মাইটোজেন-এক্টিভেটেড প্রোটিন কাইনেজ) বা PI3K (ফসফোইনোসিটাইড ৩-কাইনেজ)এর মতো সংকেতপথ সক্রিয় করার জন্য টাইরোসিন ফসফোরিলেশনের উপর নির্ভর করে, যা বৃদ্ধি, পার্থক্য এবং বিপাকের মতো গুরুত্বপূর্ণ কোষীয় প্রক্রিয়াগুলো মধ্যস্থতা করে। জি প্রোটিন-সংযুক্ত জিপিসিআর ক্যান্সারসহ অনেক রোগের সাথে জড়িত। ফলে, জিপিসিআর একটি গুরুত্বপূর্ণ ড্রাগ টার্গেট হয়ে দেখা দিয়েছে। 

সংকেত সংবহনে দ্বিতীয় বার্তাবাহক অণু এবং “কাইনেজ”প্রোটিনের ভূমিকা

যদিও প্রোটিন সংকেত-সংবহন পথগুলোতে গুরুত্বপূর্ণ, অন্য ধরনের অণুও এতে অংশগ্রহণ করতে পারে। অনেক সংকেতপথের মধ্যে “দ্বিতীয় বার্তাবাহক” নামক ছোট, অ-প্রোটিন অণু জড়িত থাকে, যা একটি লাইগান্ড (“প্রথম বার্তাবাহক”, যেমন হরমোন, নিউরোট্রান্সমিটার) এর রিসেপ্টরের সাথে আবদ্ধ হওয়ার মাধ্যমে শুরু হওয়া একটি সংকেত প্রেরণ করে কোনো একটি নিম্নধারার প্রোটিন বা এনজাইমের কাছে। “দ্বিতীয় বার্তাবাহক অণু” (যেমন cAMP, cGMP, IP, DAG, Ca², NO) সংকেত সংবহনে অত্যন্ত গুরুত্বপূর্ণ, কারণ তারা পৃষ্ঠ-রিসেপ্টর থেকে দুর্বল প্রাথমিক সংকেত (হরমোন-, নিউরোট্রান্সমিটার-সংশ্লিষ্ট)-গুলোকে পরিবর্ধন করে, তারা মধ্যস্থতাকারী অণু হিসেবে কোষের ভিতরে দ্রুত ও ব্যাপকভাবে বার্তা প্রেরণ করে এবং নির্দিষ্ট সংকেত-সংবহনের পরবর্তী (ডাউনস্ট্রিম) নিম্নধারার এনজাইম এবং প্রোটিনগুলোকে সক্রিয় ক’রে নির্দিষ্ট কার্যকরী প্রতিক্রিয়ায় (বিপাক, জিনের প্রকাশ, বৃদ্ধি) রূপান্তর করে। সাইক্লিক এএমপি (cAMP) বিবর্তনের ইতিহাসে একটি প্রাচীন মৌলিক সংকেত অণু, যার উৎপত্তি প্রাচীনতম ব্যাকটেরিয়া থেকে। এটি আদিম প্রোক্যারিওট থেকে ইউক্যারিওট পর্যন্ত জীবনের সকল ক্ষেত্রে উপস্থিত, যা ইঙ্গিত দেয় যে এর উত্থান কোটি কোটি বছর আগে হয়েছিল।

‘জিপিসিআর’, RTK বা অন্যান্য রিসেপ্টরের সাথে লাইগ্যান্ডের (যেমন গ্রোথ ফ্যাক্টর, হরমোন ইত্যাদি)বাঁধনে যে বার্তা দেওয়ার সূচনা হয়, তা “দ্বিতীয় বার্তাবাহী অণু”র দ্বারা বহুগুনে পরিবর্ধিত হয়ে কোষের বিভিন্ন কাইনেজ-সমন্বিত একটি ক্যাসকেডকে সক্রিয় করার মাধ্যমে জিনের প্রকাশ, বৃদ্ধি, পার্থক্য এবং হরমোন ক্রিয়া যেমন বিপাকীয়, জিনগত এবং শারীরবৃত্তীয় প্রতিক্রিয়াগুলো নিয়ন্ত্রণ করে।

প্রোটিন কাইনেজ এ (PKA), প্রোটিন কাইনেজ সি (PKC) এবং প্রোটিন কাইনেজ জি (PKG) — এই তিনটি এনজাইমকে প্রায় ৫০০ ধরনের প্রোটিন কাইনেজের মধ্যে AGC-কাইনেজ পরিবারের প্রতিষ্ঠাতা সদস্য হিসেবে ধরা হয়। এগুলো সেরিন/থ্রিওনিন কাইনেজের একটি প্রধান গোষ্ঠী এবং এই গোষ্ঠীটি আবির্ভুত হয়েছিল ১০০ কোটি (১ বিলিয়ন)রও বেশি বছর আগে, যখন প্রাণের মধ্যে ছিল এককোষী ইউক্যারিওট, ব্যাকটেরিয়া এবং আর্কিয়া। প্রোটিন কাইনেজগুলো সরল প্রোক্যারিওটিক পূর্বপুরুষ (বিশেষ করে মাইটোকন্ড্রীয় এবং ক্লোরোপ্লাস্ট-গুলোর মাধ্যমে) থেকে বিবর্তিত হয়েছে, যার মধ্যে হিস্টিডিন কাইনেজ এবং ব্যাকটেরীয় টাইরোসিন কাইনেজ অন্তর্ভুক্ত, যা পরবর্তীতে অত্যন্ত জটিল, নিয়ন্ত্রিত প্রকৃতকোষীয় প্রোটিন কাইনেজ গ্রুপে পরিণত হয়েছে। এই বিবর্তনে কাইনেজে অর্জিত হয়েছে একটি বা দুইটি সংরক্ষিত অনুঘটক কোর (catalytic core), বিকাশ ঘটেছে ফসফেট দাতা হিসেবে ATP বাঁধাইয়ের স্থান এবং একটি গতিশীল সক্রিয়করণ অংশের, যা এই কাইনেজগুলোকে গুরুত্বপূর্ণ আণবিক সুইচে রূপান্তরিত করেছে।  

বহুকোষীয় প্রাণীদের সংকেত-সংবহনের ক্ষেত্রে, অন্যান্য সংকেত অণু (যেমন ফসফাটেজ, জি-প্রোটিন) বিদ্যমান থাকলেও, প্রোটিন কাইনেজ-কে একটি  গুরুত্বপূর্ণ প্রধান অনুঘটক হিসেবে বিবেচনা করা হয়, কারণ এই এনজাইমগুলো এটিপি/ATP থেকে লক্ষ্য প্রোটিনে ফসফেট গ্রুপ স্থানান্তরের মাধ্যমে (ফসফোরিলেশন) তাৎক্ষণিক সংকেত পরিবর্তনের অনুমতি দেয় এবং লক্ষ্য প্রোটিনের কার্যকারিতা পরিবর্তন করে। কাজেই, ফসফরিলেশন হলো সিগন্যাল ট্রান্সডাকশন এর মূল চালক; আর একথাও বলা যায়, এই আণবিক রিলে দৌড়ে কাইনেজ অণু রানার হিসেবে কাজ করে এবং একটি রাসায়নিক “ব্যাটন” (যেমন, একটি ফসফেট গ্রুপ) পাস করে লাইনে পরবর্তী অণুকে সক্রিয় করে যতক্ষণ না একটি কোষীয় প্রতিক্রিয়া শুরু হয়। এখানে উল্লেখ্য, একটি ফসফেট গ্রুপ (PO4-3) যোগ করলে একটি বৃহৎ ঋণাত্মক চার্জ তৈরি হয়, যার ফলে লক্ষ্য প্রোটিনের কাঠামোগত পরিবর্তন আসে, যা প্রোটিন কার্যকলাপকে পরিবর্তন করে—সক্রিয় বা নিষ্ক্রিয় করে। কাইনেজগুলো বৃহত্তম, সর্বাধিক সংরক্ষিত জিন পরিবারগুলোর মধ্যে একটি, যার মধ্যে ৫০০ টিরও বেশি ভিন্ন মানব প্রোটিন কাইনেজ রয়েছে, যা  কোষে সংঘটিত বেশিরভাগ জৈবিক প্রক্রিয়া (বৃদ্ধি, অ্যাপোপটোসিস এবং বিপাক) নিয়ন্ত্রণ করে। এটি আরও উল্লেখ করার মতো যে, তাদের বৈচিত্র্যময় কার্যকারিতা সত্ত্বেও, কাইনেজ অনুঘটক ডোমেন(একটিভ সাইট)গুলো  খামির (ঈস্ট), অমেরুদণ্ডী প্রাণী এবং মানুষসহ অন্যান্য স্তন্যপায়ী প্রাণীদের মধ্যে অত্যন্ত সংরক্ষিত। যেহেতু এই অঞ্চলগুলো (অনুঘটক ডোমেন) বেঁচে থাকার জন্য অপরিহার্য (যেমন, বিপাক বা সংকেত প্রক্রিয়ায়), তাই বিবর্তনের সময়কালে এগুলো খুব কম পরিবর্তিত হয়েছে।  

বুঝতে ভুল করলে চলে না যে, কাইনেজ  এবং বিপাকীয় এনজাইমগুলো কার্যকারিতার দিক থেকে ভিন্ন: কাইনেজ এনজাইমগুলো হরমোন বা চাপের মতো বাহ্যিক সংকেতের প্রতিক্রিয়ায় আণবিক সুইচ (চালু/বন্ধ) হিসেবে কাজ করে, যা প্রোটিনের (সেরিন, থ্রিওনিন এবং টাইরোসিন অবশিষ্টাংশে) সাথে ফসফেট গ্রুপ সংযুক্ত করে কোষীয় প্রক্রিয়াগুলোকে নিয়ন্ত্রণ করে, যেখানে বিপাকীয় এনজাইম (যেমন হেক্সোকাইনেজ, পাইরুভেট কাইনেজ) ক্যাটাবলিক/অ্যানাবলিক রাসায়নিক বিক্রিয়া পরিচালনা ক’রে শক্তি উৎপাদন, যেমন গ্লুকোজ ভেঙে ফেলা (গ্লাইকোলাইসিস) এবং অণু তৈরি করে। কাইনেজগুলো সংকেতের উপর মনোনিবেশ করে, যখন বিপাকীয় এনজাইমগুলো রাসায়নিক রূপান্তরের উপর মনোনিবেশ করে।

অ্যাড্রেন্যরজিক রিসেপ্টর— জিপিসিআর পরিবারে একটি গুরুত্বপূর্ণ গ্রাহক: জিপিসিআর/GPCR-সংশ্লিষ্ট সংকেত সংবহনটি একটি ক্লাসিক উদাহরণ দিয়ে ব্যাখ্যা করতে চাই। এড্রিনাল গ্রন্থি (ক্রোমাফিন কোষ) থেকে নিঃসৃত জলে-দ্রবণীয় এপিনেফ্রিন/অ্যাড্ৰিন্যালিন হরমোন রক্তপ্রবাহের মধ্য দিয়ে ভ্রমণ ক’রে লক্ষ্য (targeted) কোষগুলোর ঝিল্লিতে নির্দিষ্ট α– এবং β-অ্যাড্রেন্যরজিক রিসেপ্টর (এগুলো জিপিসিআর)-এর সাথে আবদ্ধ হয় এবং নির্দিষ্ট জি-প্রোটিনকে সক্রিয় করে ((ছবি দেখুন)। হরমোন ছাড়া, এপিনেফ্রিন একটি রাসায়নিক বার্তাবাহক বা নিউরোট্রান্সমিটার হিসেবেও উৎপাদিত হয় মস্তিষ্কের অল্প সংখ্যক নিউরন থেকে—তবে, নিউরোট্রান্সমিটার হিসেবে দেহে এর প্রভাব বেশ সীমিত। নিউরোট্রান্সমিটার ও হরমোন উভয় ক্ষেত্রে এপিনেফ্রিন তার প্রভাব সৃষ্টি করে ‘জি প্রোটিন’-যুক্ত আলফা (α1 ও α2)- এবং বিটা-অ্যাড্রেন্যরজিক (β1, β2β3) রিসেপ্টরগুলোর সাথে আবদ্ধ হয়ে। অ্যাড্রেনার্জিক রিসেপ্টরের নানা রূপ (α1, α2, β1- β3) বিবর্তিত হয়েছে, যাতে একই সংকেত অণু – নরএপিনেফ্রিন এবং এপিনেফ্রিন – বিভিন্ন টিস্যু জুড়ে ‘AC/cAMP/PKA’ অন্তঃকোষীয় সংকেত ক্যাসকেডগুলোকে সক্রিয় করে, এক বৈচিত্র্যময়, অত্যন্ত বিশেষায়িত শারীরবৃত্তীয় প্রতিক্রিয়া (পেশি সংকোচন করা, হৃদস্পন্দন বৃদ্ধি করা, বিপাকীয় কার্যকলাপ বৃদ্ধি করা) তৈরি করতে পারে এবং বেঁচে থাকার সর্বোত্তমতা অর্জন করতে পারে। 

এপিনেফ্রিন যখন β2-অ্যাড্রেন্যরজিক রিসেপ্টরের সাথে আবদ্ধ হয়, তখন উত্তেজক-জি-প্রোটিন(Gs)/AC/cAMP/PKA সংকেতপথ কে সক্রিয় ক’রে লক্ষ্য এনজাইমগুলোকে (ফসফোরিলেশনের মাধ্যমে) সক্রিয় করে, যেমন পেশি কোষ ও যকৃত কোষে ফসফোরিলেজ কাইনেজ (গ্লাইকোজেন ভাঙ্গনের জন্য=গ্লাইকোজেনোলাইসিস)কে সক্রিয় করে এবং গ্লাইকোজেন সিন্থেজ-কে বাধা দেয়। অন্যদিকে, β1-অ্যাড্রেন্যরজিক রিসেপ্টরের সাথে আবদ্ধ হয়ে এপিনেফ্রিন কার্ডিয়াক মায়োসাইট এবং সাইনোএট্রিয়াল (SA) নোডে একই সংকেতপথ (Gs/AC/cAMP/PKA)কে সক্রিয় করে, ফলে বেশ কয়েকটি প্রোটিন, যেমন  ভোল্টেজ-গেটেড এল-টাইপ (L-type) ক্যালসিয়াম চ্যানেল এবং রায়ানোডিন রিসেপ্টর ফসফোরিলেশনের মাধ্যমে ক্যালসিয়াম নিঃসরণ বৃদ্ধি করে, ফলে হৃদস্পন্দন এবং হৃদপিণ্ডের পেশির সংকোচন বৃদ্ধি পায়। বিটা-অ্যাড্রেনার্জিক রিসেপ্টর-বিরোধী ওষুধ বা এন্টাগোনিস্ট, যা সাধারণত বিটা-ব্লকার নামে পরিচিত (যেমন এটিনোলল, মেটোপ্রোলল), হৃদস্পন্দন, সংকোচনশীলতা এবং রক্তচাপ কমাতে ব্যবহৃত হয়। এগুলো নরএপিনেফ্রিন এবং এপিনেফ্রিনকে অ্যাড্রেন্যরজিক রিসেপ্টরের সাথে আবদ্ধ হতে বাধা দেয়।

পক্ষান্তরে, এপিনেফ্রিন α2-অ্যাড্রেন্যরজিক রিসেপ্টরের সাথে আবদ্ধ হয়ে প্রতিরোধক জি-প্রোটিন (Gi) অ্যাডিনাইলেট সাইক্লেজকে বাধা দিয়ে cAMP উৎপাদন হ্রাস করে। ফলে, K+-চ্যানেলগুলোর সক্রিয়করণে কোষঝিল্লির হাইপারপোলারাইজেশন (অধিকতর ঋণাত্মক) আবহ সৃষ্টি হয় এবং ভোল্টেজ-নির্ভর Ca2+ চ্যানেলগুলো সরাসরি বাধাগ্রস্ত হয়। ফলশ্রুতিতে, ইন্সুলিন ক্ষরণ বাধাপ্রাপ্ত হয়। রক্তে গ্লুকোজের মাত্রা কমে গেলে (হাইপোগ্লাইসিমিয়া) অগ্ন্যাশয়ের বিটা-কোষে এই প্রতিক্রিয়া দেখা যায়। বিকল্পপথে, এপিনেফ্রিন যদি α1-অ্যাড্রেন্যরজিক রিসেপ্টরের সাথে আবদ্ধ হয়ে জি-প্রোটিন (Gq)কে উদ্দীপিত করার মাধ্যমে ‘ফসফোলাইপেজ সি’ (PLC β1) এনজাইমকে সক্রিয় করে, তাহলে মসৃণ পেশি সংকোচনের জন্য IP3 তৈরির মাধ্যমে অন্তঃকোষীয় ক্যালসিয়াম বৃদ্ধি করে।  যদিও অ্যাড্রেনার্জিক রিসেপ্টর (অ্যাড্রেনোসেপ্টর)গ্রুপটি মানব জিনোমে সমগ্র GPCR পরিবারকে খুব কম শতাংশে (১%) প্রতিনিধিত্ব করে, তবুও তারা সবচেয়ে গুরুত্বপূর্ণ ওষুধ লক্ষ্যবস্তুগুলোর মধ্যে একটি।।

রিসেপ্টর টাইরোসিন কাইনেজ (RTK) — কোষ পৃষ্ঠ-রিসেপ্টরগুলোর একটি অন্যতম শ্রেণি

এগুলো বিস্তার, পার্থক্য এবং বেঁচে থাকার মতো গুরুত্বপূর্ণ কোষীয় প্রক্রিয়াগুলোর মূল নিয়ন্ত্রক হিসেবে কাজ করে। জিপিসিআর এবং RTK-এর গঠন এবং প্রক্রিয়া মৌলিকভাবে ভিন্ন। জিপিসিআর হলো একক-পলিপেপটাইড, সাত-ট্রান্সমেমব্রেন রিসেপ্টর যা সংকেত শুরু করে জি-প্রোটিন সক্রিয় করার মাধ্যমে। বিপরীতে, RTK হলো এনজাইম-সংযুক্ত রিসেপ্টর যা মনোমার হিসেবে বিদ্যমান, তবে লাইগ্যান্ড বাঁধনের পর দুটো মনোমার একত্রিত হয়ে নিম্নধারার (ডাউনস্ট্রিম) সংকেতেপথগুলোকে সক্রিয় করার জন্য তাদের টাইরোসিন অবশিষ্টাংশে (রিসেপ্টরের সাইটোপ্লাজমিক লেজে) তারা নিজেরাই নিজেকে ফসফোরিলেট করে। জিপিসিআর প্রায়শই দ্বিতীয় বার্তাবাহকের মাধ্যমে (যেমন, cAMP) একটি একক পথ (দ্রুত ও স্বল্পস্থায়ী) ট্রিগার করে। কিন্তু, RTK-গুলো একই সাথে অনেকগুলো ভিন্ন সংকেতেপথ সক্রিয় (ধীর ও দীর্ঘস্থায়ী) করতে পারে, যা জটিল কোষ আচরণের জন্য তাদের আরও বহুমুখী করে তোলে। এই দুটি স্বতন্ত্র সিস্টেমের বিবর্তন কোষগুলোকে উপযুক্ত সময়গত এবং কার্যকরী প্রতিক্রিয়াসহ বিভিন্ন ধরনের বহির্কোষীয় তথ্য পরিচালনা করতে দেয়, যা বহুকোষীয়তায় রূপান্তরের জন্য অপরিহার্য ছিল। মানুষের মধ্যে, ৫৮টি ভিন্ন ‘রিসেপ্টর টাইরোসিন কাইনেজ’ বিদ্যমান, যা প্রাথমিকভাবে গ্রোথ ফ্যাক্টর, সাইটোকাইন এবং হরমোন (যেমন ইন্সুলিন)-গুলোর সাথে আবদ্ধ হতে দেখা যায়। RTK-এর বাঁধন লাইগান্ড-নির্দিষ্ট হলেও, অনেক RTK একাধিক, স্বতন্ত্র লাইগান্ড দ্বারা সক্রিয় হতে পারে। উদাহরণস্বরূপ, চারটি EGFR/HER রিসেপ্টর ১৫টি ভিন্ন জিন দ্বারা এনকোড করা লাইগ্যান্ডের একটি পরিবারের প্রতি সাড়া দেয়। কোষ বৃদ্ধিতে এর ভূমিকার কারণে, RTK সংকেতের অনিয়ন্ত্রণ সাধারণত ক্যান্সার, ডায়াবেটিস এবং প্রদাহের সাথে যুক্ত।

এই প্রবন্ধে, RTK পরিবারের একটি উদাহরণ হিসেবে ইন্সুলিন রিসেপ্টর (Ins-R) ও তার সংকেতসংবহনকে ব্যাখ্যা করা হয়েছে (ছবি দেখুন)। Ins-R হলো একধরনের টাইরোসিন কাইনেজ (tyrosine kinase) রিসেপ্টর, যা আলফা (α) ও বিটা (β), সাব-ইউনিট নিয়ে গঠিত। Ins-R-এর সাথে ইনসুলিনের বাঁধন টাইরোসিন কাইনেজ রিসেপ্টরের অটোফসফোরিলেশন বিশেষত্বকে সজাগ করে তোলে। ফলে, সাবইউনিটজুটি একে অপরের টাইরোসিন অবশিষ্টাংশগুলোতে ফসফেট গ্রুপ যুক্ত করে ফেলে। ফসফেট গ্রুপের সংযোজনে ইনসুলিন রিসেপ্টর তার সক্রিয়তা ফিরে পায় ও তাৎক্ষণিক ‘ইনসুলিন রিসেপ্টর সাবস্ট্রেট (IRS-1/2), একধরনের ডকিং প্রোটিনকে ফসফোরিলেশনের মাধ্যমে জাগিয়ে তোলে। IRS-1 বা IRS-2 (ইনসুলিন রিসেপ্টর সাবস্ট্রেট) প্রোটিনগুলো কোষ সংকেতের প্রেক্ষাপটে জি-প্রোটিনের সাথে কার্যকরীভাবে সমান্তরাল, কারণ তারা উভয়ই তাদের নিজ নিজ রিসেপ্টর শ্রেণির জন্য প্রাথমিক ডাউনস্ট্রিম ট্রান্সডিউসার হিসেবে কাজ করে। সক্রিয় IRS-1 সরাসরি ফসফোইনোসিটাইড ৩-কাইনেজ  (PI3K)-এর সাথে আবদ্ধ হয়ে সেটিকেও সক্রিয় করে, যা PIP2 (ফসফ্যাটিডিলইনোসিটল ৪,৫-বিসফসফেট) অণুকে PIP3 (ফসফ্যাটিডিলইনোসিটল ৩,৪,৫-ট্রিসফসফেট) অণুতে রূপান্তরিত করে (ছবি দেখুন)। PIP3 একটি গুরুত্বপূর্ণ সংকেতবাহী অণু, যা পালাক্রমে আরও কয়েকটি কাইনেজ, বিশেষ করে PDPK (ফসফোইনোসিটাইড-ডিপেন্ডেন্ট কাইনেজ)-1 ও প্রোটিন কাইনেজ  বি (protein kinase B, PKB)- এনজাইমকে উজ্জীবিত করে। PDPK-1 হলো একটি মাস্টার কাইনেজ, যা AKT/PKB সক্রিয়করণের জন্য অত্যন্ত গুরুত্বপূর্ণ। প্রসঙ্গতঃ PKB এনজাইম Akt1/2 (সেরিন/থ্রিওনিন কাইনেজ) এনজাইম নামেও অভিহিত। কোষাভ্যন্তরে PKB গ্লুকোজের আগমনকে সহজতর করার জন্য ভেসিকল (vesicle) ও SNARE প্রোটিনের সহযোগিতায় গ্লুকোজ ট্রান্সপোর্টার (GLUT4) বাহককে কোষঝিল্লিতে তার একটি নির্দিষ্টি অবস্থান তৈরি করে দেয়। গ্লুকোজ আকারে যেহেতু বড়, তাই সে ঝিল্লিভেদ্য অণু নয়, তার প্রয়োজন একটি বাহক, অর্থাৎ GLUT4 প্রোটিন। পর্যায়ক্রমে কোষের ভিতর ও বাহিরের মধ্যে একটি গ্লুকোজ ঘনত্বের তারতম্যের সৃষ্টি হয়- ঘনত্ব ভিতরে কম, বাইরে বেশি। অবশেষে, ব্যাপন (diffusion) প্রক্রিয়ার মাধ্যমে গ্লুকোজ সহজেই কোষের অভ্যন্তরে প্রবেশ করে। আর, এই কাজটি আরও সহজ করে দেয় PKB-মধ্যস্থতায় গ্লাইকোজেনেসিস (গ্লাইকোজেন সংশ্লেষণ) প্রক্রিয়া, যা কোষের অভ্যন্তরে গ্লুকোজের ঘনত্ব উল্লেখযোগ্যভাবে হ্রাস করে দেয়। ইন্সুলিনের ক্ষরণ কমে যাওয়া অথবা ইন্সুলিন রিসেপ্টরের কার্যক্ষমতা লাঘব হলে গ্লুকোজ তার গন্তব্যে অর্থাৎ কোষাভ্যন্তরে পৌঁছয় না। ফলে, রক্তে গ্লুকোজের পরিমাণ বেড়ে যায় এবং ডায়াবেটিস বা হাইপারগ্লাইসেমিয়া-সহ উচ্চ রক্তচাপের সৃষ্টি হয়।

PI3K/Akt সংকেতপথের সক্রিয়তার একই সাথে সক্রিয় ইনসুলিন রিসেপ্টর, Grb2/SOS অ্যাডাপ্টার প্রোটিনের সহায়তায় Ras/MAP কাইনেজ, বিশেষ করে Raf-MEK-ERK ক্যাসকেড-কেও সক্রিয় করে। PI3K সংকেতপথটি বিপাকীয় ক্রিয়াগুলো (গ্লুকোজ পরিবহন, গ্লাইকোজেন সংশ্লেষণ) পরিচালনা করে, তবে MAPK পথটি কোষের বৃদ্ধি, পার্থক্য এবং জিনের প্রকাশ (c-Fos, Bcl-2, egr-1 ইত্যাদি)কে নিয়ন্ত্রণ করে (ছবি দেখুন)।  

PI3K/Akt সংকেতপথের সক্রিয়তার একই সাথে সক্রিয় ইনসুলিন রিসেপ্টর, Grb2/SOS অ্যাডাপ্টার প্রোটিনের সহায়তায় Ras/MAP কাইনেজ, বিশেষ করে Raf-MEK-ERK ক্যাসকেড-কেও সক্রিয় করে। PI3K সংকেতপথটি বিপাকীয় ক্রিয়াগুলো (গ্লুকোজ পরিবহন, গ্লাইকোজেন সংশ্লেষণ) পরিচালনা করে, তবে MAPK পথটি কোষের বৃদ্ধি, পার্থক্য এবং জিনের প্রকাশ (c-Fos, Bcl-2, egr-1 ইত্যাদি)কে নিয়ন্ত্রণ করে।

শেষকথা

পরিবেশগত উদ্দীপনার ব্যাখ্যা এবং প্রতিক্রিয়া জানাতে জীবনের জন্য সিগন্যাল ট্রান্সডাকশন বা সংকেতসংবহন একটি মৌলিক প্রক্রিয়া হিসেবে আবির্ভূত হয়, যা সরল এককোষী সংবেদনশীল প্রক্রিয়া (যেমন, ব্যাকটেরিয়ার কেমোরিসেপশন) থেকে বহুকোষী জীবের জটিল, সংরক্ষিত পথে বিবর্তিত হয়। এই সংকেত পথগুলো বিকাশ, অনাক্রম্যতা/ইমিউনিটি এবং বিপাকের মতো কোষীয় প্রক্রিয়াগুলোর সমন্বয় সাধনের জন্য অপরিহার্য। কার্যকরীভাবে, এই নেটওয়ার্কগুলোর বিবর্তন — প্রায়শই ম্যাপকাইনেজ (MAPK)-এর মতো সংরক্ষিত ক্যাসকেড জড়িত — যা জীবকে জিনের প্রকাশ এবং আচরণে সুনির্দিষ্ট, দ্রুত পরিবর্তনে বহিরাগত সংকেতগুলোকে অনুবাদ করে অভিযোজিত হতে দেয়। প্রাণীকূলে তাদের উচ্চ সংরক্ষণ থেকে বোঝা যায় যে, ক্রমবর্ধমান জটিলতা সত্ত্বেও, সংকেতের মৌলিক যুক্তি বেঁচে থাকার জন্য প্রয়োজনীয় একটি শক্তিশালী বিবর্তনীয় বৈশিষ্ট্য হিসেবে রয়ে গেছে।   

সাহায্যকারী নোটঃ 

ইনোসিটোল ১,৪,৫-ট্রিসফসফেট (Inositol 1.4.5-trisphosphate, IP3): InsP3 বা IP3 হলো সংকেতবাহী একটি ইনোসিটল-ফসফেট অণু। ফসফোলাইপেজ সি (PLC) এনজাইম দ্বারা কোষঝিল্লিতে অবস্থিত ফসফ্যাটিডিল-ইনোসিটল (phosphatidylinositol, PIP2)-এর হাইড্রোলাইসিস (hydrolysis)-র মাধ্যমে এই অণুটি উদ্ভুত। বিপাকীয় প্রক্রিয়ায় IP3-এর অণুসঙ্গ হিসেবে ডায়াসিলগ্লিসারল (diacylglycerol, DAG)ও তৈরি হয়। IP3 হলো অন্তঃকোষীয় একটি দ্বিতীয় সংকেতবাহী অণু (second messenger molecule), যা জৈবিক কোষে সংকেতসংবহনে (signal transduction) ব্যবহৃত হয়। DAG কোষঝিল্লির সাথে আবদ্ধ থাকে, কিন্তু IP3 কোষীয় জলের সাথে মিশে গিয়ে বার্তাবাহক হিসেবে দ্রুত ছুটে যায় এন্ডোপ্লাজমিক রেটিকুলাম (endoplasmic reticulum, ER)-এ অবস্থিত অপেক্ষমাণ IP3-রিসেপ্টরের টানে। IP3-রিসেপ্টর (IP3R) একটি ক্যালসিয়াম চ্যানেল (calcium channel)ও বটে। তাদের বন্ধনে ER থেকে পর্যাপ্ত পরিমাণ ক্যালসিয়াম সাইটোপ্লাজমে মুক্তি পায়। ক্যালসিয়াম স্বয়ং একটি  অন্তঃকোষীয় সংকেতবাহী পদার্থ। উদাহরণস্বরূপ, সাইটোপ্লাজমে ক্যালসিয়ামের ঘনত্ব বৃদ্ধির ফলে পেশি কোষের সংকোচন ঘটে। এছাড়াও, IP3-DAG প্রোটিন কাইনেজ সি (PKC) সংকেতপ্রবাহকেও সক্রিয় করে।

জি-প্রোটিন (G-protein): জি-প্রোটিন, যা গুয়ানিন নিউক্লিওটাইড-বাইন্ডিং প্রোটিন নামেও পরিচিত, GTPase- নামক এনজাইমের বৃহত্তর গ্রুপে অন্তর্গত। যদিও জি-প্রোটিনের প্রধান কাজ হলো গুয়ানোসিন ট্রাইফসফেট (GTP)কে ভেঙে গুয়ানোসিন ডাইফসফেট (GDP) অণুতে পরিণত করা, কিন্তু এর বাইরেও তারা বিভিন্ন জৈবিক ভূমিকার সাথে যুক্ত। এটি কোষাভ্যন্তরে একটি আণবিক সুইচ হিসেবে কাজ করে, যার মাধ্যমে কোষের বাইরের বিভিন্ন লাইগান্ড-বাহিত উদ্দীপনা রিসেপ্টর-মধ্যস্ততায় সংকেতের মাধ্যমে কোষাভ্যন্তরে প্রেরণ করে। জি প্রোটিনের ক্রিয়াকলাপ নিয়ন্ত্রিত হয় GTP দ্বারা- অর্থ্যাৎ, GTP-র বন্ধনে  জি-প্রোটিন সক্রিয় হয়, আর GDP-এর সাথে আবদ্ধ থাকাকালীন তারা নিষ্ক্রিয় থাকে। আকার ও জটিলতা ভেদে জি-প্রোটিনের দুটি শ্রেণি রয়েছে: ছোট মনোমেরিক জি-প্রোটিন (RAS, যা পৃথকভাবে বর্ণনা করা হয়েছে) ও হেটেরোট্রাইমেরিক জি-প্রোটিন কমপ্লেক্স। জি-প্রোটিন কমপ্লেক্সটি আলফা (Gα), বিটা (Gβ) এবং গামা (Gγ) সাবইউনিট দ্বারা গঠিত। Gα সাবইউনিটের অন্তর্ভুক্ত বেশ কয়েকটি উপসাবইউনিট রয়েছে, যার মধ্যে Gsα (G উদ্দীপক), Giα (G প্রতিরোধক) ও Gq11 উল্লেখযোগ্য। বাহ্যিক সংকেতবাহী লাইগান্ডগুলো (যেমন হরমোন, নিউরোট্রান্সমিটার) কোষের ঝিল্লিজুড়ে থাকা এক ধরনের সর্বাধিক বৈচিত্র্যময় রিসেপ্টর GPCR (G protein-coupled receptor)-এর কোষের বাইরে থাকা একটি ডোমেনের সাথে আবদ্ধ হয়ে রিসেপ্টরের অন্তঃকোষীয় ডোমেন (domain)-সংযুক্ত নির্দিষ্ট জি-প্রোটিনকে সক্রিয় করে। সক্রিয়তায়, Gα অংশটি ‘GPCR-জি প্রোটিন কমপ্লেক্স’ থেকে বিচ্ছিন্ন হয়ে কোষঝিল্লির উপর প্রভাবশালী এনজাইমগুলোকে সক্রিয় করে। অর্থাৎ, সক্রিয় জি-প্রোটিনটি কোষের ঝিল্লিতে একটি এফেক্টর (effector) এনজাইমের (যেমন অ্যাডিনাইলেট সাইক্লেজ, ফসফোলিপেজ সি) সাথে আবদ্ধ হয়, যা অন্তঃকোষীয় দ্বিতীয় ম্যাসেঞ্জার অণু (যেমন, cAMP, ইনোসিটল ১,৪,৫-ট্রাইফসফেট [IP3], ডায়াসিল গ্লিসেরল [DAG]) তৈরি করে, যা সাইটোসোলের কোষীয় প্রতিক্রিয়াগুলোকে উদ্দীপিত করে এবং নিয়ন্ত্রণ করে বিপাকীয় এনজাইম, আয়ন চ্যানেল, ট্রান্সপোর্টার প্রোটিন, ডিএনএ প্রতিলিপিকরণ, গতিশীলতা ও সংকোচনশীলতা, ভ্রূণের বিকাশ, স্মৃতিশক্তি ইত্যাদি।  Gsα উদ্দীপিত করে cAMP-নির্ভর সংকেতসংবহনকে, যা পক্ষান্তরে প্রতিহত হয় Giα উদ্দীপনার মাধ্যমে। আর, Gq11 সক্রিয়তায় উদ্দীপিত হয় IP3 সংকেতসংবহন ব্যবস্থা। আলফ্রেড জি. গিলম্যান এবং মার্টিন রডবেল “জি-প্রোটিন এবং কোষে সংকেত সংবহনে জি-প্রোটিনের ভূমিকা” আবিষ্কারের জন্য ফিজিওলজি বা মেডিসিনে নোবেল পুরস্কার পান ১৯৯৪ সালে।

অরফান রিসেপ্টর (Orphan receptor): এগুলো প্রোটিন এবং গঠনগতভাবে পরিচিত রিসেপ্টরের (সাধারণত জি প্রোটিন-কাপল্ড রিসেপ্টর বা নিউক্লিয়ার রিসেপ্টর) অনুরূপ, যাদের একটি চিহ্নিত অন্তর্জাত (এন্ডোজেনাস) লাইগ্যান্ড নেই। অপরিচিত অংশীদারের কারণে তাদের “অরফান” বা “অনাথ রিসেপ্টর” বলা হয়। প্রায় ৫০টি চিহ্নিত মানব নিউক্লিয়ার রিসেপ্টরের মধ্যে প্রায় ২৫টি হলো অনাথ, এবং এতে স্টেরয়েড হরমোন, থাইরয়েড হরমোন, বিভিন্ন লিপিড এবং অক্সিস্টেরলের রিসেপ্টর অন্তর্ভুক্ত রয়েছে। উদাহরণস্বরূপ, ROR-আল্ফ়া, ROR-গামা, PXR, TLX হলো উল্ল্যেখযোগ্য অরফান রিসেপ্টর, যেগুলো নিউরোবায়োলজি, বিপাকীয় ব্যাধি, রিউমাটয়েড আর্থ্রাইটিস এবং ক্যান্সার থেরাপিতে ওষুধ আবিষ্কারের জন্য প্রতিশ্রুতিশীল লক্ষ্য। এখানে উল্লেখ্য, PPARγ মূলত একটি এতিম রিসেপ্টর ছিল, যা বর্তমানে দত্তক নিউক্লিয়ার রিসেপ্টর হিসেবে পরিচিত। এটি টাইপ২ ডায়াবেটিসের চিকিৎসায় গ্লিটাজোন (TZDs) ওষুধের লক্ষ্যবস্তু হিসেবে পাওয়া গেছে।