০৮:২৯ অপরাহ্ন, বৃহস্পতিবার, ২৪ সেপ্টেম্বর ২০২৬, ৯ আশ্বিন ১৪৩৩ বঙ্গাব্দ
টটিপোটেন্সি ও প্লুরিপোটেন্সি: জীবনের উৎস, স্টেম কোষের ক্ষমতা ও আধুনিক চিকিৎসায় সম্ভাবনা

টটিপোটেন্সি ও স্টেম কোষের মহানুভবতা

একটি টোটিপোটেন্ট কোষ প্লাসেন্টাসহ সমস্ত প্রয়োজনীয় টিস্যু এবং অঙ্গসহ একটি সম্পূর্ণ জীবের জন্ম দিতে পারে।

টটিপোটেন্সি হলো একটি নিষিক্ত ডিম্বাণুর সেই অনন্য ক্ষমতা, যা থেকে একটি সম্পূর্ণ জীব গড়ে উঠতে পারে। অন্যদিকে প্লুরিপোটেন্সি ভ্রূণীয় স্টেম কোষের বহুমুখী রূপান্তর ক্ষমতা বোঝায়। এই প্রবন্ধে জাইগোট রিপ্রোগ্রামিং, এপিজেনেটিক পরিবর্তন এবং পুনর্জন্ম চিকিৎসায় স্টেম কোষের ভবিষ্যৎ প্রয়োগ বিস্তারিতভাবে আলোচনা করা হয়েছে। এই প্রবন্ধে লেখক চেষ্টা করেছেন কত সহজভাবে টটিপোটেন্সি ও স্টেম কোষ সংক্রান্ত বিষয়টি পাঠকবৃন্দের কাছে সহজবোধ্য করে তুলে ধরা যায়। আর, প্রবন্ধটি বোধগম্যের সুবিধার্থে বিশেষ কিছু ডিএনএ- ও জিন-সম্পর্কিত শব্দ বা উপাদান প্রবন্ধটির শেষে নোট আকারে বর্ণনা করেছেন তিনি।


সারাংশ

অন্টোজেনি বা ভ্রূণীয় বিকাশ একটি একক নিষিক্ত কোষ বা জাইগোট থেকে শুরু হয়। প্রাথমিক ভ্রূণের জাইগোট এবং প্রতিটি প্রাথমিক ব্লাস্টোমেয়ারের সমগ্র জীবের মধ্যে বিকশিত হওয়ার সম্ভাবনা রয়েছে, অর্থাৎ দেহের যেকোনো কোষ তারা তৈরি করতে সক্ষম- কোষের এই অসাধারণ ক্ষমতাটিকে বলা হয় টোটিপোটেনসি। বিকাশের সাথে সাথে, পৃথক ব্লাস্টোমেয়ারের সামগ্রিক বিকাশের সম্ভাবনা বা টোটিপোটেনসি ধীরে ধীরে হ্রাস পায়, যার ফলে পরবর্তীকালে প্লুরিপোটেন্ট, মাল্টিপোটেন্ট, অলিগোপোটেন্ট, ইউনিপোটেন্ট এবং অবশেষে প্রান্তিক সোমাটিক বা দেহ কোষ তৈরি হয়। তবে, সোমাটিক কোষের বিকাশের সম্ভাবনা কৃত্তিমভাবে দেহের যেকোনো কোষ থেকে সরাসরি পুনঃপ্রোগ্রামিংয়ের মাধ্যমে প্লুরিপোটেন্ট অবস্থায় পুনরুদ্ধার করা যেতে পারে।

বিষয়: চিকিৎসা বিজ্ঞান, জিনবিজ্ঞান, অণুপ্রাণ বিজ্ঞান, ডিএনএ, জীববিদ্যা, ভ্রূণবিদ্যা, টোটিপোটেন্সি, প্লুরিপোটেন্সি, স্টেম কোষ


ভূমিকা

একটি একক নিষিক্ত কোষ দ্বারা পুরো দেহের বিশেষায়িত টিস্যু এবং অঙ্গসহ একটি জটিল জীবে বিকশিত হওয়ার এক বিস্ময়কর যাত্রা এই প্রবন্ধে আলোচিত হয়েছে। এই যাত্রায়, দুটি গুরুত্বপূর্ণ ধরনের ভ্রূণীয় কোষের ক্ষমতা সম্পর্কে আলোচনা করেছি, যেমন কোষের টোটিপোটেন্সি এবং প্লুরিপোটেন্সি, যা ভ্রূণীয় বিকাশ এবং পুনর্জন্মমূলক চিকিৎসায় বেশ তাৎপর্যপূর্ণ। জীবনের উৎপত্তির সময়, নিষিক্ত ডিম্বাণু বা জাইগোট এবং বিকাশমান ভ্রূণের প্রাথমিক কোষগুলি টোটিপোটেন্সি প্রদর্শন করে, যা সর্বোচ্চ স্তরের শক্তি। এর অর্থ হল, একটি টোটিপোটেন্ট কোষ প্লাসেন্টাসহ সমস্ত প্রয়োজনীয় টিস্যু এবং অঙ্গসহ একটি সম্পূর্ণ জীবের জন্ম দিতে পারে। এরা সর্বতোমুখী প্রতিভার অধিকারী। এই সহজাত ক্ষমতা মানব বিকাশের প্রাথমিক পর্যায়ে এবং ফলস্বরূপ, প্রজননের মাধ্যমে একটি প্রজাতির ধারাবাহিকতার জন্য অপরিহার্য। বিকাশের অগ্রগতির সাথে সাথে, কোষগুলি ধীরে ধীরে তাদের সর্বব্যাপী টোটিপোটেন্সি হারায় এবং রূপান্তরিত হয় সীমিত ভিন্নমাত্রায়, তবুও অত্যন্ত বহুমুখী অবস্থায়, যা প্লুরিপোটেন্সি নামে পরিচিত। প্লুরিপোটেন্ট স্টেম কোষ, যেমন ব্লাস্টোসিস্টের অভ্যন্তরীণ কোষস্তর বা ভ্রূণীয় স্টেম সেল (ESC) এবং প্ররোচিত প্লুরিপোটেন্ট স্টেম কোষ (iPSC) দ্বারা উদাহরণস্বরূপ, তিনটি ভ্রূণীয়স্তরের (এক্টোডার্ম, মেসোডার্ম এবং এন্ডোডার্ম) মধ্যে প্রায় যেকোনো কোষের মধ্যে পার্থক্য করতে পারে, যা শেষ পর্যন্ত শরীরের সমস্ত টিস্যু এবং অঙ্গগুলির জন্ম দেয়। তবে, টোটিপোটেন্ট কোষের বিপরীতে, তারা প্লাসেন্টার মতো অতিরিক্ত ভ্রূণীয় কাঠামো তৈরি করতে পারে না। এই অসাধারণ কোষগুলির স্ব-পুনর্নবীকরণ এবং পার্থক্য করার ক্ষমতা তাদের অণুপ্রাণ বিজ্ঞান ও চিকিৎসা বিজ্ঞানে অমূল্য হাতিয়ার করে তুলেছে, যা কোষের ভাগ্য সিদ্ধান্ত এবং অঙ্গ গঠনের মতো মৌলিক প্রক্রিয়াগুলির অন্তর্দৃষ্টি প্রদান করে। 

জাইগোটে এপিজিনগত পরিবর্তন এবং টোটিপোটেন্সি অর্জন

যদিও জিনগত কোড বা তথ্য হল উত্তরাধিকারের প্রাথমিক মাধ্যম, তবুও ক্রমবর্ধমান প্রমাণ থেকে জানা যাচ্ছে যে, এপিজিনগত প্রক্রিয়াগুলি, যেমন ডিএনএ মিথিলেশন এবং হিস্টোন পরিবর্তন, প্রজন্মের মধ্যে তথ্য এবং বৈশিষ্ট্য প্রেরণে যথেষ্ট ভূমিকা পালন করে। ডিএনএ-র এপিজিনগত পরিবর্তন জননকোষ (শুক্রাণু বা ডিম) ও জাইগোট উভয়ের মধ্যেই প্রতিষ্ঠিত হতে হয়। গ্যামেট (শুক্রাণু ও ডিম্বাণু) বিকাশের সময়, এই কোষগুলিতে জিনের প্রকাশ নিয়ন্ত্রণ করার জন্য এবং প্রাথমিক ভ্রূণের বিকাশকে প্রভাবিত করার জন্য নির্দিষ্ট এপিজেনেটিক চিহ্ন স্থাপন করা হয়। ডিএনএ মিথিলেশন এবং হিস্টোন পরিবর্তনসহ এই পরিবর্তনগুলি জাইগোটে প্রেরণ করা হয়, যেখানে পরবর্তীতে আরও পুনঃপ্রোগ্রামিং এবং নতুন এপিজেনেটিক প্যাটার্ন স্থাপন করা হয়। 

একটি কোষ বিভাজিত হয়ে সৃষ্টি করে সমজাতীয় কোষসমষ্টির। তবে একটি কোষ যখন তার বিভাজনের মাধ্যমে তৈরি করে ভিন্ন জাতীয় কোষ ও টিস্যু, তখন তার মধ্যে গড়ে উঠে জিনগত এক বিশেষ ক্ষমতা — সে ক্ষমতাই হচ্ছে কোষটির টোটিপোটেন্সি এবং কোষটিকে বলা হয় টোটিপোটেন্ট- যা এই প্রবন্ধের ভূমিকায় উল্লেখ করেছি। মানবভ্রূণ বিকাশের প্রথম পর্যায়ে, বিশেষ করে ব্লাস্টোমেয়ার (৪-কোষ বিশিষ্ট) পর্যায় পর্যন্ত, জাইগোট থেকে প্রাপ্ত কোষগুলি টোটিপোটেন্সি ধরে রাখে। পরবর্তীতে, কোষগুলি পার্থক্য এবং নির্দিষ্ট লক্ষ্যের (যেমন দেহের বিভিন্ন অঙ্গ সৃষ্টি করার লক্ষ্য) উপযোগী হতে শুরু করায় এই টোটিপোটেন্সি ধীরে ধীরে হারিয়ে যায়। মূলত, যদিও উদ্ভিদের তুলনায় বেশিরভাগ প্রাণীর মধ্যে টোটিপোটেন্সির পরিধি সীমিত, বলা যায় এটি প্রাণী বিকাশের শুধুমাত্র প্রাথমিক পর্যায়ের একটি গুরুত্বপূর্ণ বৈশিষ্ট্য।

‘জাইগোট রিপ্রোগ্রামিং’ হল এমন একটি প্রক্রিয়া যেখানে একটি নিষিক্ত ডিম্বাণু (জাইগোট) তার কোষীয় এবং আণবিক গঠনে উল্লেখযোগ্য পরিবর্তনের মধ্য দিয়ে যায়, যার মধ্যে রয়েছে এপিজিনগত পরিবর্তন এবং ডিম্বাণুর নিজস্ব মেসেঞ্জার আরএনএ (mRNA)গুলিকে ভেঙে দিয়ে জাইগোট-জিনগুলির প্রকাশ, যা অত্যন্ত বিশেষায়িত মাতৃ-অবস্থা থেকে একটি নতুন জীবে বিকশিত হতে সক্ষম টোটিপোটেন্ট ও প্লুরিপোটেন্ট অবস্থায় রূপান্তরিত করে। এর মধ্যে জাইগোট-জিনোমের সক্রিয়করণ এবং মাতৃ-mRNA এবং প্রোটিনের অবক্ষয় উভয়ই জড়িত। পূর্বেই উল্লেখ করেছি, শুক্রাণু এবং ডিম্বাণুর সংমিশ্রণ দ্বারা জাইগোট গঠিত হয়, যার প্রতিটির নিজস্ব বিশেষায়িত জিনগত এবং এপিজিনগত প্রোফাইল রয়েছে, বিশেষকরে এপিজেনেটিক চিহ্ন, যেমন ডিএনএ মিথিলেশন। জাইগোটের পুনঃপ্রোগ্রামের মধ্য দিয়ে এই পূর্ব-বিদ্যমান প্যাটার্নগুলিকে মুছে ফেলা বা পরিবর্তন করা অপরিহার্য, যা জাইগোটকে টোটিপোটেন্ট (বহির্ভ্রূণ টিস্যুসহ শরীরের সমস্ত ধরনের কোষ গঠনে সক্ষম) হতে দেয়। সর্বব্যাপী ডিএনএ জুড়ে ডিমিথিলেশনের এই গুরুত্বপূর্ণ কাজটি করে বিশেষ এক এনজাইম, টেন-ইলেভেন ট্রান্সলোকেশন (TET) নামক একটি এনজাইম, বিশেষ করে TET3। মাতৃ চিত্রকলা মুছে ফেলে জাইগোট জিনোমে নতুন করে মিথিলেশন-চিত্রকলা সুচারুরূপে সৃষ্টির ক্ষেত্রে ডিএনএ মিথাইলট্রান্সফারেজ (DNMT) নামক আরেকটি এনজাইম, বিশেষকরে  DNMT3A and DNMT3B, জড়িত থাকে (Ma JY, Protein Cell, 5, 2014)।

জাইগোটে পুনঃপ্রোগ্রাম করতে যে তিনটি প্রক্রিয়া প্রাথমিকভাবে খুব গুরুত্বপূর্ণ তা হল: 

১) জাইগোট জিনোমের জিনগুলিকে সক্রিয় ও প্রকাশযোগ্য করার জন্য পৈতৃ (শুক্রাণু থেকে প্রাপ্ত) ও মাতৃ ডিএনএ থেকে সর্বব্যাপী মিথাইল গ্রুপ (CH3, এপিজেনেটিক চিহ্ন) অপসারিত হয়। এই প্রক্রিয়া-টিকে বলা হয় ডিমিথিলেশন। এই প্রক্রিয়ায়, পিতামাতার জিনোম থেকে (শুক্রাণু ও ডিম্বাণুর ডিএনএ) এই “এপিজেনেটিক স্মৃতি”, যার মধ্যে ডিএনএ মিথাইলেশনও রয়েছে, মুছে ফেলে হয়, যেন জাইগোটকে নতুন করে একটি নতুন জীবন সৃষ্টি করবার সুযোগ বা জিনগত পরিবেশ দেয়া হয়। মূলত, ডিমিথিলেশন জাইগোট-জিনোমের পুনঃপ্রোগ্রামিংয়ের একটি গুরুত্বপূর্ণ পদক্ষেপ, যা জাইগোটকে একটি নতুন এপিজেনেটিক পরিচয় স্থাপন ক’রে একটি বিকাশমূলক প্রোগ্রাম শুরু করতে দেয়। 

২) হিস্টোন প্রোটিনের (যা ডিএনএ-কে একধরনের মোড়কে বা প্যাকেজে রাখে) পরিবর্তন, যেমন এসিটিলেশন (এসিটিল গ্রুপের, CH3CO-, সংযোজন) এবং মিথিলেশন, জাইগোট জিনোম সক্রিয়করণে গুরুত্বপূর্ণ ভূমিকা পালন করে, যা প্রাথমিক ভ্রূণজনিত ক্ষেত্রে একটি গুরুত্বপূর্ণ বিকাশমূলক মাইলফলক। এই প্রক্রিয়া চলাকালীন, উত্তরাধিকারসূত্রে প্রাপ্ত মাতৃ/ডিম্বাণু জিনগত উপাদান ধীরে ধীরে জাইগোটের নিজস্ব জিনগত উপাদান দ্বারা প্রতিস্থাপিত হয়। এই রূপান্তরের সময়, হিস্টোন প্রোটিনের পরিবর্তন অপরিহার্য, যা ক্রোমাটিনের (ডিএনএ এবং প্রোটিন) গঠন এবং জিনের প্রকাশ নিয়ন্ত্রণ করে। বিশেষকরে, H3K4me3 (হিস্টোন—৩ প্রোটিনের লাইসিন অবশিষ্টাংশে তিনটি মিথাইল গ্রুপের সংযোজন) এর মতো নির্দিষ্ট হিস্টোন পরিবর্তনগুলি, বিকাশমূলক জিনের সক্রিয়করণের সাথে সম্পর্কিত, যা ভ্রূণ-বিকাশের সাথে জড়িত প্রয়োজনীয় জিনের সঠিক প্রকাশ নিশ্চিত করে। এই পরিবর্তন আবশ্যকীয়, যাতে করে জিন প্রকাশের লক্ষ্যে ক্রোমাটিনকে ট্রান্সক্রিপশন ফ্যাক্টরগুলির (যেমন DUX4, TPRX পরিবার, OBOX পরিবার) দ্বারা কমবেশি অভিগম্য করে তোলে। 

৩) মাতৃ (ডিম্বাণু) মেসেঞ্জার আরএনএ এবং প্রোটিনগুলি ক্ষয়প্রাপ্ত হয়, যখন জাইগোটের জিনোম নিজস্ব প্রতিলিপন/ট্রান্সক্রিপশন, তথা mRNA-সংশ্লেষণ প্রক্রিয়ায় সক্রিয় হয়। গবেষণায় দেখা যায় যে, এই রূপান্তরটি ঘটা শুরু হয় ভ্রূণের এক-কোষ পর্যায় থেকে, কিন্তু আট-কোষ পর্যায়ে (নিষিক্তকরণের প্রায় ৬৮ ঘন্টা পরে) জাইগোট জিনোমের উল্লেখযোগ্য জিন সক্রিয়করণ ঘটে (Lee MT, Annu Rev Cell Dev Biol, 2014), যখন মাতৃ-জিনোমের পরিবর্তে জাইগোট বা ডিপ্লয়েড ভ্রূণ জিনোমের একচেটিয়া নিয়ন্ত্রণে আসে। এই গুরুত্বপূর্ণ রূপান্তরের মধ্যে মাতৃ উপাদানগুলি থেকে বিকাশগত নিয়ন্ত্রণ গ্রহণ করে জাইগোটিক জিনোম। বলে রাখা প্রয়োজন, মাতৃ/ডিম্বাণু মেসেঞ্জার-আরএনএ ও প্রোটিনগুলির বিলুপ্তি বা অবক্ষয়ের জন্য নির্দিষ্ট কিছু প্রোটিন ও মাইক্রো-আরএনএ (miRNA/miR) জড়িত, যেমন Lsm1-7-Pat1 প্রোটিন কমপ্লেক্স, Dcp1-Dcp2 প্রোটিন কমপ্লেক্স, এক্সোন্যুক্লিয়েজ Xrn1 এবং মাইক্রো-আরএনএ miR-৩০২ এবং miR-৩৭২। পুনঃপ্রোগ্রাম প্রক্রিয়ায় কোথাও ব্যাঘাত ঘটলে বিকাশগত ত্রুটি এবং রোগের কারণ হতে পারে।

টোটিপোটেন্সি অর্জনে যেসব জিন মূলত দায়ী:

টোটিপোটেন্সি-সম্পর্কিত জিন হল সেসব জিন, যার প্রক্রিয়ায় একটি একক কোষের ভ্রূণ এবং বহির্ভ্রূণ (প্লাসেন্টা) উভয় টিস্যুসহ একটি সম্পূর্ণ জীবে বিকশিত হওয়ার সম্ভাবনা তৈরি হয়। মূল জিনগুলির মধ্যে অন্তর্ভুক্ত রয়েছে সদ্যোজাত জাইগোট-টির সক্রিয়করণ (জাইগোটিক জিনোম অ্যাক্টিভেশন-ZGA) প্রক্রিয়ার সাথে জড়িত জিন, যেমন হোমিওবক্স ট্রান্সক্রিপশন ফ্যাক্টর, DUX (ডাবল হোমিওবক্স) এবং এর মানব সমরূপ DUX4 (ডাবল হোমিওবক্স ৪), এবং মানব ডিএনএ-তে অন্তর্নিবিষ্ট রেট্রোভাইরাস জিন, HERVL (হিউম্যান এন্ডোজেনাস রেট্রোভাইরাসএল)। এসব জিন, এপিজিনগত ফ্যাক্টরগুলির সাথে, প্রাথমিক ভ্রূণ বিকাশের সময় টোটিপোটেন্সি থেকে প্লুরিপোটেন্সি (প্লাসেন্টা ছাড়া, দেহের অন্যান্য অঙ্গ তৈরি করার ক্ষমতা)তে রূপান্তর নিয়ন্ত্রণ করে। নিষিক্তকরণের ৪-৫ দিন পরেই সৃষ্টি হয় মানব ভ্রূণের ব্লাস্টোসিস্ট (blastocyst), যার অভ্যন্তরীণ কোষগুলি তৈরি করে প্রাথমিক স্টেম সেল। সেগুলিই হচ্ছে আদর্শ প্লুরিপোটেন্ট কোষ যা ভ্রূণস্তরের যেকোনোটি (এক্টোডার্ম, মেজোডার্ম ও এন্ডোডার্ম) তৈরি করতে সক্ষম। আর, ব্লাস্টোসিস্টের বহিঃস্তর ট্রোফোব্লাস্ট তৈরি করে প্লাসেন্টা।

DUX4 জিনটি জাইগোটের জিনোম (নবজাত ভ্রূণের জিনোম) সক্রিয় করার জন্য অত্যন্ত গুরুত্বপূর্ণ। এই জিনটি ক্রোমোজোম ৪ এর সাবটেলোমেরিক অঞ্চলে (টেলোমেয়ার সংলগ্ন) একটি D4Z4 ম্যাক্রোস্যাটেলাইট রিপিট আকারে অবস্থিত। DUX4 প্রোটিন অনেক জিনের একটি ট্রান্সক্রিপশনাল অ্যাক্টিভেটর। DUX4 সাধারণত ভ্রূণের বিকাশের প্রাথমিক পর্যায়ে প্রকাশিত হয়, যা জাইগোটের জিনোম (নিষেকের পরে ভ্রূণের জিনোম) সক্রিয়করণে ভূমিকা পালন করে। DPPA2 (ডেভেলপমেন্টাল প্লুরিপোটেন্সি অ্যাসোসিয়েটেড ২) এবং DPPA4 জিনগুলিও জাইগোটের জিনোম সক্রিয়করণের প্রাথমিক পর্যায়ে জড়িত, এবং তাদের কার্যকলাপ DUX প্রকাশের সাথে প্রাসঙ্গিক।

ZSCAN4 এবং অন্যান্য ২-কোষ-নির্দিষ্ট জিন DUX এর সাথে আবদ্ধ হয়, তাদের সক্রিয় করে এবং টোটিপোটেন্ট অবস্থায় অবদান রাখে। ZSCAN4 টেলোমেয়ার রক্ষণাবেক্ষণ, ডিএনএ মেরামত এবং ক্রোমাটিন পুনর্নির্মাণের সাথে জড়িত। এছাড়া, HERVL জিনটি টোটিপোটেন্ট কোষেও ঢের প্রকাশ পায়। এগুলি নিয়ন্ত্রক উপাদান হিসেবে কাজ করতে পারে, কাছাকাছি জিনের ট্রান্সক্রিপশনকে প্রভাবিত করে। তারা জাইগোট জিনোম সক্রিয়তায় ভূমিকা পালন করে এবং DUX4 দ্বারা আবদ্ধ হতে পারে। অধিকন্তু, LINE-1 উপাদান/এলিমেন্ট (একমাত্র স্বয়ংক্রিয় এবং প্রোটিন-কোডিং ট্রান্সপোজেবল উপাদান) হল অন্য একধরনের ‘রেট্রোট্রান্সপোজন’ উপাদান যা টোটিপোটেন্ট কোষেও অত্যন্ত প্রকাশিত হয় এবং DUX এবং LINE জিনদুটি একে অপরকে নিয়ন্ত্রণ করে। Dux4 নিয়ন্ত্রণ করার জন্য KAP1/নিউক্লিওলিনের মতো প্রোটিন নিয়োগ করতে পারে। এছাড়াও, প্লুরিপোটেন্সি ও টোটিপোটেন্সি বজায় রাখার জন্য এবং কোষের ভাগ্য নিয়ন্ত্রণ করার জন্য OCT3/4, SOX2, ZNF675, LSM1, NANOG প্রোটিন এবং Wnt/β-ক্যাটেনিন সংকেতপথ জড়িত।

টোটিপটেন্ট এবং স্টেম কোষের মধ্যে পার্থক্য কোথায়?

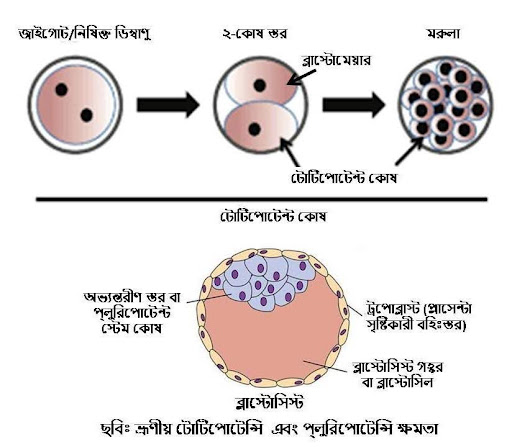
টোটিপোটেন্ট এবং ভ্রূণীয় পূর্বজ কোষ বা স্টেম কোষ উভয়েরই বিভিন্ন ধরনের কোষে বিভক্ত হওয়ার সম্ভাবনা রয়েছে, তবে তাদের বিকাশের ক্ষমতা আলাদা। জাইগোট বা ভ্রূণীয় ৪-কোষ পর্যায়ের ব্লাসটোমেয়ার,  এমনকি ১৬-কোষ বিশিষ্ট মরুলা (morula) দশার মতো টোটিপোটেন্ট কোষগুলি শরীরের যেকোনো ধরনের কোষে বিভক্ত হতে পারে, যার মধ্যে প্লাসেন্টার মতো বহির্ভ্রূণ টিস্যুও অন্তর্ভুক্ত, যেখানে স্টেম কোষ বা প্লুরিপোটেন্ট কোষগুলি শরীরের সকল ধরনের কোষে বিভক্ত হতে পারে বটে, কিন্তু বহির্ভ্রূণ বা প্লাসেন্টা টিস্যুতে নয়- এটাই হল তাদের মূল পার্থক্য। প্রসঙ্গত, টোটিপোটেন্সি শুধুমাত্র প্রাথমিক ভ্রূণ কোষের একটি বৈশিষ্ট্য, যা বিকাশের অগ্রগতির সাথে সাথে ধীরে ধীরে হারিয়ে যায় এবং রূপান্তরিত হয় প্লুরিপোটেন্ট স্টেম কোষে।

টোটিপোটেন্সি ব্যতিরেকে, ভ্রূণীয় বিকাশমান কোষগুলিকে বিভেদের ক্ষমতা বা সীমাবদ্ধতার উপর ভিত্তি করে বিভিন্ন শ্রেণিতে ভাগ করা হয়েছে, যেমন প্লুরিপোটেন্ট, মাল্টিপোটেন্ট এবং অলিগোপোটেন্ট। অর্থাৎ, একটি ভ্রূণ যত বিকশিত হতে থাকে, যত অগ্রসর হতে থাকে, সেই কোষগুলির ভিন্ন জাতীয় কোষ তৈরি করার ক্ষমতা ততটা কমতে থাকে। উদাহরণস্বরূপঃ পূর্বেই উল্লেখ করেছি, ডিম্বাণু নিষিক্তকরণের ৪-৫ দিন পরেই সৃষ্টি হয় মানব-ভ্রূণের ব্লাস্টোসিস্ট দশা, যার অভ্যন্তরীণ কোষগুলি তৈরি করে প্রাথমিক স্টেম কোষ। এতে প্রায় ১৫০টি কোষ থাকে। এই ভ্রূণীয় স্টেম কোষগুলি-ই হচ্ছে আদর্শ প্লুরিপোটেন্ট কোষ, যা তিনটি ভ্রূণস্তরের (এক্টোডার্ম, মেসোডার্ম ও এন্ডোডার্ম) যেকোনোটি তৈরি করতে সক্ষম। অর্থাৎ, এরা শরীরের যেকোনো ধরনের কোষে ও টিস্যুতে পরিণত হতে পারে। এগুলি ভ্রূণ অবস্থায় ক্ষতিগ্রস্ত টিস্যু এবং অঙ্গগুলির পুনর্জন্ম বা মেরামতের জন্য ব্যবহৃত হয় (ছবি দেখুন)। 

টোটিপোটেন্ট এবং ভ্রূণীয় পূর্বজ কোষ বা স্টেম কোষ উভয়েরই বিভিন্ন ধরনের কোষে বিভক্ত হওয়ার সম্ভাবনা রয়েছে, তবে তাদের বিকাশের ক্ষমতা আলাদা।

ভ্রূণবিকাশে আরও কিছুটা অগ্রসর হলে দেখা যায়, মেসোডার্ম থেকে উদ্ভুত অস্থিমজ্জার হেমাটোপোয়েটিক (hematopoietic) স্টেম কোষ, যাকে বলা হয় পূর্বজ (primordial) কোষ, যার থেকে তৈরি হয় বিভিন্ন ধরনের রক্ত কোষ/কণিকা, যেমন লিম্ফোসাইট, নিউট্রোফিল, মোনোসাইট ইত্যাদি, কিন্তু এই কোষগুলি মস্তিস্ক, অস্থি বা অন্যান্য কোষে রূপান্তরিত হবার সক্ষমতা রাখে না- অর্থাৎ, এদের কোষীয় ক্ষমতা বা সীমা প্লুরিপোটেন্ট কোষগুলির থেকে কমে আসে। এদের বলা হয় মাল্টিপোটেন্ট কোষ। এরকম আরও মাল্টিপোটেন্ট স্টেম কোষ হচ্ছে এন্ডোথেলীয় (endothelial) স্টেম কোষ (রক্তনালির পুনর্জন্মে অবদান রাখে), মেসেনকাইম স্টেম কোষ (তৈরি করে হাড়, তরুণাস্থি এবং চর্বি কোষ) ও নার্ভিয় স্টেম কোষ (স্নায়ুতন্ত্র গঠনকারী নিউরন এবং গ্লিয়া তৈরির জন্য দায়ী)। সক্ষমতা আরও সংকুচিত হয়ে আসলে লিম্ফয়েড বা মাইলয়েড স্টেম কোষগুলি, যারা শুধুমাত্র তৈরি করতে সক্ষম রক্তকোষ বি-লিম্ফোসাইট ও টি-লিম্ফোসাইট, তারা হল অলিগোপোটেন্ট কোষ; এবং, সবথেকে দুর্বলতম সক্ষমতার অধিকারী, যাদের বলা ইউনিপোটেন্ট কোষ, তাদের মধ্যে পার্থক্য করার ক্ষমতা সবচেয়ে কম, তারা শুধুমাত্র একধরনের কোষের মধ্যে পার্থক্য করতে সক্ষম।  উদাহরণস্বরূপ, পেশি স্টেম কোষ, যা শুধুমাত্র পেশি কোষ তৈরি করতে পারে। এগুলি প্রাপ্তবয়স্ক স্টেম সেল। শুধু পেশিটিস্যু নয়, এরকম আরও প্রাপ্তবয়স্ক ইউনিপোটেন্ট স্টেম কোষ আমাদের বিভিন্ন অঙ্গে বিদ্যমান, এমনকি রেটিনার মধ্যেও, যেগুলি সেই টিস্যুর রক্ষণাবেক্ষণ এবং মেরামত করতে সহায়তা করতে পারে। 

কিছু ব্যতিক্রম আছে। প্রাকৃতিকভাবে কিছু নিম্নগ্রুপের প্রাণী, যেমন হাইড্রা (hydra)-র ইন্টারস্টিসিয়াল কোষ (বিভিন্ন টিস্যুর ফাঁকা স্থানে পাওয়া কোষগুলি) বা কিছু ফিতাকৃমির (যেমন প্লানারিয়া গ্রুপের প্রাণী) কোষ প্রয়োজনবোধে দেহের যেকোনো কোষেই রূপান্তরিত হতে পারে, এমনকি পূর্ণাঙ্গ দেহ। উদ্ভিদের প্রোক্যাম্বিয়াম কোষগুলিও একধরনের টোটিপটেন্ট কোষ, যা প্রয়োজন অনুসারে কখনো ক্যাম্বিয়াম, কখনো জাইলেম বা ফ্লোয়েম কোষে রূপান্তরিত হয়। মানবদেহেও এই বৈশিষ্ট্য আমরা দেখেছি, তবে সেই টোটিপোটেন্সি পর্যায়ে নয়, যেমন অস্থিমজ্জার স্টেম কোষগুলি প্রয়োজন হলেই দেহের যেকোনো রক্তকণিকায় পরিণত হতে পারে বটে, তবে দেহের অন্য অঙ্গ, যেমন মস্তিষ্ক, হৃদপিন্ড, বা যকৃত গঠন করতে সক্ষম নয়।

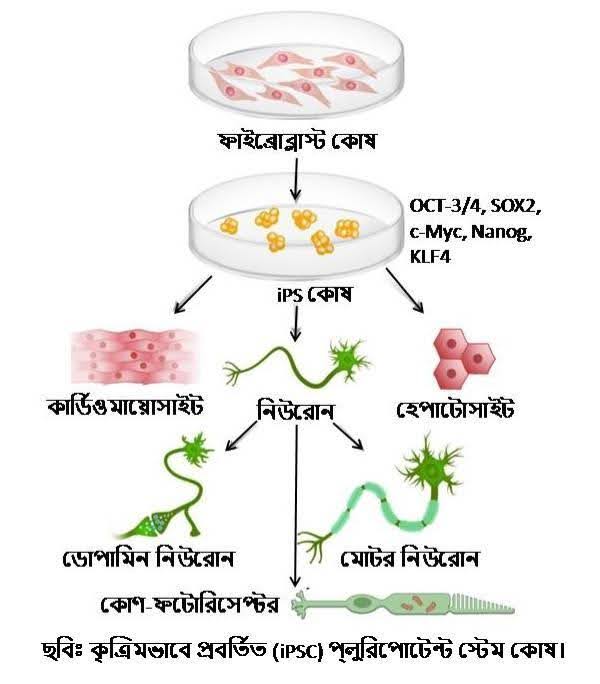
বহুল আলোচিত এবং কৌতুহলোদ্দীপক আরও এক জাতীয় স্টেম কোষ হল “কৃত্রিমভাবে প্ররোচিত প্লুরিপোটেন্ট স্টেম কোষ”, যা সাধারণত iPS কোষ বা iPSC (ইন্ডিউস্ড প্লুরিপোটেন্ট স্টেম সেল) হিসেবে পরিচিত (ছবি দেখুন)।

কৃতৃমভাবে প্রবর্তিত
কৃতৃমভাবে প্রবর্তিত পলুরিপোটেন্ট স্টেম কোষ

এই কোষগুলি হল এক ধরনের প্লুরিপোটেন্ট স্টেম কোষ যা সরাসরি প্রাপ্তবয়স্ক সোমাটিক/দেহ কোষ থেকে তৈরি করা যেতে পারে। মূলত, বিজ্ঞানীরা রোগীর নিজস্ব কোষ (যেমন ত্বক বা রক্তকণিকা) নিতে পারেন এবং ভ্রূণীয় স্টেম কোষের মতো আচরণ করার জন্য তাদের পুনরায় প্রোগ্রাম করতে পারেন, যাদের শরীরের যেকোনো ধরনের কোষে পার্থক্য করার ক্ষমতা রয়েছে। সোমাটিক কোষে নির্দিষ্ট ট্রান্সক্রিপশন ফ্যাক্টর (যেমন- Oct4, Sox2, Klf4 ও c-Myc) প্রবর্তন ক’রে কার্যকরভাবে তাদের বিশেষায়িত মূল জিনের প্রকাশ বন্ধ করা হয় এবং প্লুরিপোটেন্সির সাথে সম্পর্কিত জিনগুলি চালু ক’রে এটি অর্জন করা হয়। প্ররোচিত এই কোষগুলি প্রাকৃতিকভাবে প্লুরিপোটেন্ট ভ্রূণীয় স্টেম কোষগুলির বৈশিষ্ট্য অর্জন করে, যা পূর্বে ভ্রূণীয় স্টেম কোষের জন্য-ই একচেটিয়া বলে মনে করা হত। এই পদ্ধতিতে, ইঁদুরের ফাইব্রোব্লাস্ট কোষগুলিকে প্লুরিপোটেন্ট ক’রে অণুপ্রাণ বিজ্ঞানে এক বিপ্লব এনে দিয়েছিলেন বিজ্ঞানী শিনিয়া ইয়ামানাকা ও জন গার্ডন (Cell 126, 2006)। তাঁদের সেই যুগান্তকারী আবিষ্কারের জন্য ২০১২ সালে তাঁরা নোবেল পুরস্কারে ভূষিত হন। iPSCs প্রযুক্তি প্রয়োগ করে অণুপ্রাণ বিজ্ঞান ও চিকিৎসা বিজ্ঞানে এক অভূতপূর্ব অগ্রগতি হয়েছে। রোগ অধ্যয়ন এবং সম্ভাব্য থেরাপি বিকাশের জন্য একটি নতুন পথ প্রদান করেছে। বর্তমান এই আর্টিকেলটির সঙ্গে প্রাসঙ্গিক, ২০২৩ সালে আমার একটি লেখা  “রেটিনার অবক্ষয়জনিত দৃষ্টিহীনতা এবং প্লুরিপোটেন্ট স্টেম কোষ থেরাপি” পড়লে উপকৃত হবেন (www.bishleshon.com/7917)।


ট্রান্সডিফারেন্সিয়েশন বা কোষ আন্তঃরূপান্তর এবং মানুষের মধ্যে সীমাবদ্ধতা

সাধারণভাবে, অমেরুদণ্ডী প্রাণীদের মধ্যে অনেকের অনন্য এক বিকাশমূলক ক্ষমতা রয়েছে। সেই বৈশিষ্ট্যকে বলা হয় ট্রান্সডিফারেন্সিয়েশন বা কোষ আন্তঃরূপান্তর, অর্থাৎ প্রাপ্তবয়স্ক অবস্থায় দেহের একধরনের কোষ থেকে ভিন্ন-ধরনের কোষ তৈরি বা টিস্যু প্রতিস্থাপনের বিষয়টি বুঝায়। যেমন, এক ধরনের জেলিফিশ (Turritopsis dohrnii) তার জীবনচক্রের উপর একটি জৈবিক “রিসেট বোতাম” চাপ দিয়ে বার্ধক্যজনিত মৃত্যুকে এড়িয়ে যায়,  ফিরে যায় তার পরিণত পর্যায়  (মেডুসা) থেকে কিশোর পর্যায়ে (পলিপ) এবং এই প্রক্রিয়ার পুনরাবৃত্তি ঘটিয়ে অর্জন করে অমরত্ব। সেই প্রক্রিয়ায়, অবিশ্বাস্যভাবে একটি প্লানারিয়া (ফিতা কৃমি) গ্রুপের প্রাণীর যেকোনো খণ্ডিত অংশ থেকে পূর্ণাঙ্গ দেহ তৈরির চমকপ্রদ ক্ষমতা রয়েছে। তবে, অমেরুদণ্ডী সরল জীবের তুলনায় মেরুদণ্ডী প্রাণীদের মধ্যে এই ধরনের কোষ আন্তঃরূপান্তরের সম্ভাবনা সাধারণত সীমিত, তবে কিছু প্রাণীদের মধ্যে রয়েছে বিস্ময়কর ক্ষমতা। যেমন, জেব্রাফিশ তাদের পাখনা, হৃদপিণ্ড এবং স্নায়ুতন্ত্রের অংশসহ বিভিন্ন টিস্যু এবং অঙ্গ পুনর্জন্ম করার ক্ষমতা রাখে। একধরনের কিলিফিশ, ফিরোজা কিলিফিশ (Nothobranchius furzeri), তার ভ্রূণ বা যৌবন পর্যায়ে বিকাশ স্থগিত রেখে তাদের তারুণ্যকে ধরে রাখে। এছাড়া, ‘নিউট’ উভচর প্রাণীগুলির (একধরনের স্যালামান্ডার) বেশিরভাগ টিস্যু পুনর্জন্ম করতে সক্ষম, যার মধ্যে একটি হল তাদের চোখের আইরিশ টিস্যু দ্বারা প্রতিস্থাপিত হয় ক্ষতিগ্রস্ত লেন্স। স্যালামাণ্ডার গ্রুপের তরুণসুলভ বাহ্যিক ফুলকা এবং লেজবিশিষ্ট ‘অ্যাক্সোলোটল’ ট্যাডপোল বা লার্ভা তাদের হারিয়ে যাওয়া বা ক্ষতিগ্রস্ত অঙ্গ এবং এমনকি, তাদের মস্তিষ্কের অংশগুলিও পুনরুত্থিত করার এক অনন্য ক্ষমতার অধিকারী। এরা প্রাপ্তবয়স্ক আকারে রূপান্তরিত হয় না, বাঁচে ১৫ থেকে ২০ বছর। পক্ষান্তরে, হারানো অঙ্গ-প্রত্যঙ্গ পুনর্নবায়ন করা বা বার্ধক্যকে তারুণ্যে ফিরিয়ে আনতে পারার মতো অসাধারণ বৈশিষ্ট্য বা ক্ষমতা মানুষের মধ্যে না থাকলেও,  আমাদের দেহের কিছু টিস্যু এবং অঙ্গ মেরামত এবং প্রতিস্থাপন করার ক্ষমতা রয়েছে। যেমন, ত্বকের বাইরের স্তর, এপিডার্মিস, ক্রমাগত নিজেকে পুনর্নবীকরণ করে, চুল কাটা বা ঝরে যাওয়ার পরে আবার সেগুলি বৃদ্ধি পায়, বা হারানো আঙুলের নখ ও ডগা পুনরায় বৃদ্ধি পেতে পারে। এছাড়া, মাসিকের সময় জরায়ুর আস্তরণ এন্ডোমেট্রিয়ামের পুনর্জন্ম, অথবা ক্ষতিগ্রস্ত যকৃত তার উল্লেখযোগ্য অংশ থেকে পুনরুত্পাদন করার ক্ষমতায় অসাধারণ।

উপসংহার 

এই প্রবন্ধে টোটিপোটেন্ট এবং প্লুরিপোটেন্ট উভয় স্টেম কোষের গভীর সম্ভাবনা আলোচিত হয়েছে। নিঃসন্দেহে, ভ্রূণ স্টেম কোষ এবং প্ররোচিত প্লুরিপোটেন্ট স্টেম কোষগুলি প্রতিস্থাপন, রোগের প্রক্রিয়া অধ্যয়ন এবং সম্ভাব্য থেরাপি বিকাশের জন্য নির্দিষ্ট কোষের ধরন এবং টিস্যু তৈরিতে উল্লেখযোগ্য প্রতিশ্রুতি দেখিয়েছে- যেখানে এটি পুনর্জন্মমূলক থেরাপি চিকিৎসার ভিত্তিপ্রস্তর হয়ে ওঠে এবং অগণিত রোগীর জীবনকে রূপান্তরিত করে। অনস্বীকার্য সম্ভাবনা থাকা সত্ত্বেও, উল্লেখযোগ্য বাধা রয়ে গেছে, যার মধ্যে রয়েছে প্রাথমিক ভ্রূণ স্টেম কোষ ব্যবহারকে ঘিরে নীতিগত বিবেচনা, স্টেম কোষ পার্থক্যমূলক নিয়ন্ত্রণে চ্যালেঞ্জ এবং টিউমারসৃষ্টির সম্ভাবনা। সেই কারণে, ভবিষ্যতের গবেষণার দিকনির্দেশনাগুলি নির্দেশিত পার্থক্যমূলক প্রোটোকলকে পরিমার্জন, পুনঃপ্রোগ্রামিংয়ের সুরক্ষা ও দক্ষতা বৃদ্ধি, এবং জিনগতভাবে পরিবর্তিত স্টেম কোষ এবং এক্সোসোম (কোষ দ্বারা নিঃসৃত ক্ষুদ্র ভেসিকল বা থলি)-ভিত্তিক থেরাপির মতো উদ্ভাবনী পদ্ধতিগুলি অন্বেষণের উপর দৃষ্টি নিবদ্ধ করা উচিত। এছাড়া, জেলিফিশ, কিলিফিশ বা স্যালামান্ডার প্রাণীগুলি গবেষণার মডেল-জীব হিসেবে গৃহীত হতে পারে, যা মানুষের অঙ্গগুলির পুনর্জন্ম বৃদ্ধি এবং বার্ধক্য-সম্পর্কিত রোগের বিরুদ্ধে লড়াই করবার উপায় খুঁজে বের করার প্রতিশ্রুতি দেয়।  


সাহায্যকারী নোট:

Dcp1-Dcp2 কমপ্লেক্স: এই কমপ্লেক্সটি দুটি প্রোটিন, Dcp1-Dcp2, নিয়ে গঠিত। এই প্রোটিন কমপ্লেক্সটি মেসেঞ্জার আরএনএ (mRNA) থেকে ৫’-ক্যাপ (7-methylguanosine cap/m7G) অপসারণ ক’রে mRNA অবক্ষয়ে গুরুত্বপূর্ণ ভূমিকা পালন করে। Dcp2 হল একটি এনজাইম, যা ৫’-ক্যাপটিকে হাইড্রোলাইজ করার জন্য দায়ী। এই এনজাইমটি  ক্যাপ-কে ভেঙে মুক্ত করে ৭-মিথাইলগুয়ানোসাইন ডাইফসফেট (7mGDP) এবং একটি ৫’-মনোফসফেট mRNA, এবং Dcp1 উল্লিখিত কার্যকলাপকে সহযোগিতা ক’রে ডিক্যাপিং প্রক্রিয়াটিকে আরও দক্ষ করে তোলে। এছাড়া, Dcp1-Dcp2 কমপ্লেক্স এর কার্যকলাপ অন্যান্য প্রোটিন-ফ্যাক্টর দ্বারাও নিয়ন্ত্রিত হয়, যার মধ্যে রয়েছে Edc3, Lsm1-7/Pat1 এবং কিছু মাইক্রো-আরএনএ (miRNA)। সর্বপরি, এই কমপ্লেক্সটি কোষীয় উপাদানগুলির একটি মূল উপাদান যা mRNA স্থিতিশীলতা নিয়ন্ত্রণ ক’রে জিনের প্রকাশ নিয়ন্ত্রণ করে। 

HERVL (হিউম্যান এন্ডোজেনাস রেট্রোভাইরাস-লাইক):  HERVL হল একধরনের ট্রান্সপোজেবল উপাদান, যা মানব ডিএনএ-তে সন্নিবেশিত রেট্রোভাইরাস (HERV) এর বৃহত্তর গ্রুপের অংশ। এই উপাদানগুলি প্রাচীন রেট্রোভাইরাস সংক্রমণের অবশিষ্টাংশ যা লক্ষ লক্ষ বছর আগে মানব জিনোমে সন্নিবেশিত হয়েছিল, এবং এগুলি বংশপরম্পরায় সন্তানদের মধ্যে প্রবাহিত হয়। HERVL উপাদানগুলি বিবর্তনীয় সময়ের সাথে মানুষের জিনোমে সম্ভাব্যভাবে জিনের অভিব্যক্তি এবং নিয়ন্ত্রণকে প্রভাবিত করেছে। যদিও অনেক HERV উপাদান নিষ্ক্রিয়, কিন্তু কিছু কিছু ক্যান্সার, অটোইমিউন রোগ এবং স্নায়বিক ব্যাধিসহ বিভিন্ন রোগের সাথে এরা যুক্ত।  

Lsm1-7-Pat1 কমপ্লেক্স: এই প্রোটিন কমপ্লেক্সটি হলো ইউক্যারিওটিক কোষগুলিতে মেসেঞ্জার আরএনএ (mRNA) ক্ষয়পথের একটি গুরুত্বপূর্ণ উপাদান, বিশেষ করে এই প্রোটিনগুলি ৫’- থেকে ৩’-mRNA অবক্ষয় প্রক্রিয়ায় জড়িত। এই কমপ্লেক্সে Lsm1-7 প্রোটিন (Lsm1, Lsm2, Lsm3, Lsm4, Lsm5, Lsm6, এবং Lsm7) এবং Pat1 প্রোটিনের সমন্বয়ে একটি হেপ্টামেরিক রিং রয়েছে। এটি ডিঅ্যাডিনাইলেশন (পলি-A লেজ অপসারণ) ও mRNA ডিক্যাপিং (৫’-ক্যাপ অপসারণ) উভয়ের সাথে জড়িত। মানব জিনোমে এই কমপ্লেক্সটি অত্যন্ত সংরক্ষিত এবং AU-সমৃদ্ধ উপাদান-মধ্যস্থ ক্ষয় এবং মাইক্রো-আরএনএ (miRNA) নীরবকরণসহ বিভিন্ন mRNA-ক্ষয়পথে ভূমিকা পালন করে। নবজাত ভ্রূণের জাইগোট-জিনোম সক্রিয়করণের সময় মাতৃ-mRNAগুলির অবক্ষয়ের সাথেও জড়িত হলো এই কমপ্লেক্স প্রোটিন।  

D4Z4 repeat: D: DNA বোঝায়। 4: ক্রোমোজোম সংখ্যা (ক্রোমোজোম 4) নির্দেশ করে যেখানে এটি অবস্থিত। Z: এর সমান্তরাল পুনরাবৃত্তিমূলক প্রকৃতি নির্দেশ করে। 4: ঐতিহাসিকভাবে এই অঞ্চলের সাথে সম্পর্কিত একটি নির্দিষ্ট ক্লোন বা মার্কার ক্রম নির্দেশিত।


ট্রান্সক্রিপশন ফ্যাক্টর (Transcription factor, TF): একটি জিনের নির্দিষ্ট ডিএনএ অনুক্রমে আবদ্ধ হয়ে ডিএনএ থেকে মেসেঞ্জার আরএনএ (mRNA)-তে জিনগত তথ্যের প্রতিলিপন (transcription) এর হার নিয়ন্ত্রণ করে এক বা একাধিক ট্রান্সক্রিপশন ফ্যাক্টর। এই ফ্যাক্টরগুলি হলো প্রোটিন। সাধারণতঃ TF-গুলি আবদ্ধ হয় একটি জিনের নিয়ন্ত্রক অঞ্চলের নির্দিষ্ট প্রমোটর (promoter) বা এনহ্যান্সার (enhancer) অণুক্রমে, যা রেসপন্স এলিমেন্ট বা cis-element নামে অভিহিত; আর, ট্রান্সক্রিপশন ফ্যাক্টর হচ্ছে ট্রান্স-এলিমেন্ট (trans-element)। তবে, কিছু মৌলিক TF আছে (TFIIA- TFIIH ফ্যাক্টর) যেগুলি  ডিএনএ-র সাথে সরাসরি আবদ্ধ না হয়ে আরএনএ পলিমেরেজ (RNA polymerase) এনজাইমের সাথে যুক্ত হয়ে একটি কমপ্লেক্স তৈরি করে, যা স্বভাবিকভাবে প্রতিলিপন প্রক্রিয়া শুরু করতে সহযোগিতা করে। অধিকাংশ ট্রান্সক্রিপশন ফ্যাক্টরের কাজ হল জিনগুলির প্রকাশ নিয়ন্ত্রণ করা, যাতে করে সেগুলি সঠিক সময়ে এবং সঠিক পরিমাণে জীবের কাঙ্ক্ষিত কোষে প্রকাশ পায়। TF-নিয়ন্ত্রণের মাধ্যমে একটি জিনের প্রকাশ বৃদ্ধি বা হ্রাস পায়। কোষ বিভাজন থেকে শুরু করে ভ্রূণের বিকাশ, কোষের বৃদ্ধি, কোষের মৃত্যু, ইমিউন সিস্টেম নিয়ন্ত্রণসহ দেহের বিভিন্ন কর্মকান্ড পরিচালনার জন্য TF-গুলি সমন্বিতভাবে কাজ করে। এমনকি, মানব-Y ক্রোমোজোমে অবস্থিত লিঙ্গ-নির্ধারক অঞ্চল SRY (sex-determining region Y) জিন দ্বারা এনকোড করা ট্রান্সক্রিপশন ফ্যাক্টর পূরুষ-লিঙ্গ নির্ধারণে প্রধান ভূমিকা পালন করে। মানবজিনোমে এ যাবৎ ১৬০০ ভিন্ন ধরনের ট্রান্সক্রিপশন ফ্যাক্টরের সন্ধান পাওয়া গিয়েছে। মানব জিনোমের প্রায় ১০% জিন ট্রান্সক্রিপশন ফ্যাক্টর সংশ্লেষণের সংকেত বহন করে, যা TF গ্রূপটিকে মানব প্রোটিনের একক বৃহত্তম পরিবার করে তুলেছে। সাইটোপ্লাজমে ভাসমান TF-গুলি সক্রিয় হতে পারে কোনো লাইগ্যান্ড (যেমন এস্ট্রোজেন)-র বাঁধনে কিংবা অধিকাংশ ক্ষেত্রে, কাইনেজ এনজাইম দ্বারা ফসফোরিলেশনের মাধ্যমে, অথবা সক্রিয় হয় সমজাতীয় (যেমন, estrogen receptor) বা বিজাতীয় (যেমন, cFos/cJun) ডাইমার তৈরির মাধ্যমে। প্রসঙ্গতঃ TF-গুলিকে বলা হয় তৃতীয় গ্ৰুপের বার্তাবাহী অণু (third messenger molecule), যেমন দ্বিতীয় গ্ৰুপের বার্তাবাহী অণু হচ্ছে Ca2+, cAMP, cGMP ও IP3, এবং প্রথম গ্ৰুপের বার্তাবাহী অণু হচ্ছে একটি লাইগ্যান্ড, যেমন হরমোন। এই প্রবন্ধে, জাইগোট জিনোম সক্রিয়তায় প্রাথমিক ভ্রূণে যে ট্রান্সক্রিপশন ফ্যাক্টরটি অপরিহার্য, সেটি হলো মানব DUOX বা DUOX4। এছাড়াও রয়েছে OCT3/4, SOX2, এবং NANOG।

ট্রান্সপোজেবল এলিমেন্ট (Transposable element, TE): জিনোমে বেশ কিছু ডিএনএ-র খন্ডসমূহ সমগ্র জিনোমজুড়ে ছুটোছুটি করে; এরা ট্রান্সপোজেবল এলিমেন্ট (TE) নামে পরিচিত, যেমন অ্যালু (Alu) এলিমেন্ট। TE রয়েছে দুই ধরনের: ট্রান্সপোজন (transposon) ও রেট্রো-ট্রান্সপোজন (retro-transposon)। এই দুইয়ের মধ্যে পার্থক্য হল: ট্রান্সপোজনগুলি কাট এন্ড পেস্ট (cut and pase) পদ্ধতি অনুসরণ ক’রে স্থান বদল করে, জিনোমে এদের সংখ্যা কম (জিনোমের ৩%); আর, রেট্রোট্রান্সপোজনগুলি স্থান বদল করে না বটে, কিন্তু কপি এন্ড পেস্ট (copy and paste)এর মাধ্যমে তাদের সংখ্যা বৃদ্বি করে এবং জিনোম বা বংশানুসমগ্রের এখানে-সেখানে নিজেদের একীভূত করে নেয়। জিনোমে এদের সংখ্যা অনেক বেশি, জিনোমের প্রায় ৪২ শতাংশ। গত শতাব্দীর চল্লিশের দশকে ভুট্টা নিয়ে গবেষণা করতে গিয়ে বারবারা ম্যাকক্লিনটক (Barbara McClintock) ডিএনএ-র এই চলিষ্ণু বৈশিষ্ট্য অবলোকন করেছিলেন এবং তাঁর আবিষ্কার সনাতন জিনতত্ত্বে এক বিপ্লব এনেছিল, যদিও প্রায় ত্রিশটি বছর তাঁর আবিষ্কারে কেও গুরুত্ব দেয়নি। অবশেষে, এই বিষয়ে একটি আন্তর্জাতিক স্বীকৃতি পেয়ে তিনি নোবেল পুরস্কার পান ১৯৮৩ সালে। তিনি দেখিয়েছিলেন, প্রতিটি ট্রান্সপোজন এক বিশেষ ধরনের এনজাইম ‘ট্রান্সপোজেজ’ (transposase) তৈরি করে, যা ‘কাট এবং পেস্ট’ প্রক্রিয়া দ্বারা ট্রান্সপোজন-খন্ডটিকে জিনোমের অন্য অংশে জোড়া দিতে সহায়তা করে। কেটে দেয়া ও জোড়া দেয়ার শূন্যস্থানগুলি পূরণ হয় মানব ডিএনএ পলিমেরেজ ও ডিএনএ লাইগেজ উৎসেচক দ্বারা। আশ্চর্যের বিষয় হচ্ছে, এদের জঙ্গমতার পেছনে কোনো সঠিক নিয়মনীতি নেই, রীতিমত এক ধরনের হঠকারিতা। দেখুন রেট্রোট্রান্সপোজোন। 

রেট্রোট্রান্সপোজোন (Retrotransposon): রেট্রোট্রান্সপোজোন হল ডিএনএ-তে একটি চলিষ্ণু উপাদান (ট্রান্সপোজেবল এলিমেন্ট), যা ইউক্যারিওটিক জিনোমে একীভূত হওয়ার জন্য নিজেদের একটি ডিএনএ কপি তৈরি করতে বিপরীত প্রতিলিপন ব্যবহার করে। তাই রেট্রোভাইরাসের মতো, ইউক্যারিওটিক জিনোমেও রিভার্স ট্রান্সক্রিপ্টেজ (RT), RNase H, এবং প্রোটিয়েজ জিনগুলি অবস্থান করে, তবে জিনোমে ভাইরাসের ক্যাপসিড জিনের অভাব থাকায় তারা (রেট্রোট্রান্সপোজোন) ভাইরাস তৈরি করতে পারে না, কিন্তু  বংশপরম্পরায় জনন কোষের মাধ্যমে সেগুলি ছড়িয়ে পড়ে বংশধরদের মধ্যে। একই জিনোমের মধ্যেও, মধ্যবর্তী আরএনএ কপি তৈরির মাধ্যমে তারা জিনোমের এক অবস্থান থেকে অন্য অবস্থানে স্থানান্তরিত হতে পারে। এভাবেই জিনোমের অবারিত প্রসার ঘটেছে। প্রসঙ্গতঃ মানবজিনোমে (৩.২ বিলিয়ন নিউক্লিওটাইড) রেট্রোট্রান্সপোজনগুলি জুড়ে রয়েছে প্রায় ৪২ শতাংশ, অর্থাৎ জিনোমের প্রায় অর্ধেক। গবেষণাগারে, RT ব্যবহৃত হয় ক্লোনিং ও রিভার্স ট্রান্সক্রিপশন পলিমারেজ চেইন রিঅ্যাকশন (RT-PCR) নামক একটি কৌশলে।


রেট্রোট্রান্সপোজনগুলি আকারে বেশ বড়। এরা স্থান বদল করে না বটে, কিন্তু কপি এন্ড পেস্ট (copy and paste)এর মাধ্যমে শুধু তাদের সংখ্যা বৃদ্বি করে এবং বংশানুসমগ্রের এখানে-সেখানে নিজেদের একীভূত করে নেয়। এভাবেই মানবসহ সুকেন্দ্রিক জীবের জিনোম ক্রমবর্ধমান। বর্তমান মানবজিনোমে (৩.২ বিলিয়ন নিউক্লিওটাইড) রেট্রো-ট্রান্সপোজনগুলি জুড়ে রয়েছে প্রায় ৪২ শতাংশ, অর্থাৎ জিনোমের প্রায় অর্ধেক। রেট্রো-ট্রান্সপোজন তিনভাগে বিভক্ত: LINE (long interspersed nuclear elements, ৬ kb), SINE (Short interspersed nuclear elements, ৫০০ bp) এবং LTR (long terminal repeats)-রেট্রো-ট্রান্সপোজন। LINE ও SINE গ্রুপে LTR থাকে না। রেট্রোভাইরাসের (যেমন, HIV) মতো LTR-রেট্রোট্রান্সপোজোন ও LINE এলিমেন্টগুলিতে ‘রিভার্স ট্রান্সক্রিপটেজ’ (reverse transcriptase) এনজাইম তৈরি করবার জন্য জিন রয়েছে। তাই খুব সহজেই তাদের আরএনএ-প্রতিলিপিগুলি (RNA transcripts) ডিএনএ-তে রূপান্তরিত হয়ে মানবজিনোমে প্রবেশ করে। ক্রমান্বয়ে, এভাবেই জিনোমের অবারিত প্রসার ঘটেছে, বেড়েছে নিউক্লীয়টাইডের সংখ্যা। রেট্রোট্রান্সপোজোনগুলিতে ‘রিভার্স ট্রান্সক্রিপটেজ’ জিন বিদ্যমান এবং বর্তমানে, মানবজিনোমে LINE এলিমেন্ট রয়েছে প্রায় ৮ লক্ষ ৫০ হাজার কপি। SINE রেট্রোট্রান্সপোজন ‘রিভার্স ট্রান্সক্রিপটেজ’ তৈরির জিন ধারণ করে না,  তাই তারা সহযোগিতা নেয় LINE থেকে সৃষ্ট ‘‘রিভার্স ট্রান্সক্রিপটেজ’-র। মানবজিনোমসহ সকল ইউক্যারিওট জিনোমে বিশাল এই ট্রান্সপোজেবল উপাদান (TE)-পরিবারটি রয়েছে যুগ-যুগান্তর পরজীবী-ডিএনএ হিসেবে। গুরুত্বপূর্ণ জিনগুলির মধ্যে এদের অনুপ্রবেশ ভয়ানক রকমের রোগ (যেমন ক্যান্সার, নিউরো-ডিজেনারেটিভ বা স্নায়বিক অবক্ষয়মূলক রোগ) ও জিনোম অস্থিরতার সৃষ্টি করে। সাম্প্রতিক একটি গবেষণায় দেখা গিয়েছে যে, জিনোম অস্থিরতা সৃষ্টিকারী এই ট্রান্সপোজেবল উপাদানগুলির বিশেষকরে অ্যাডেনিন নিউক্লিওবেসের প্রক্রমমান মিথিলেশন (methylation) জীবের বার্ধক্য প্রক্রিয়ায় উল্লেখযোগ্যভাবে অবদান রাখে। দেখা গিয়েছে, TE-গুলির প্রকাশ দমন ক’রে, অথবা Piwi-piRNA সঙ্কেতপথকে অতিরিক্ত প্রকাশ ক’রে জীবের আয়ুষ্কাল উল্লেখযোগ্য হারে বৃদ্ধি পেয়েছে (Sturm Á et al., Nature Commun. 14, 2023)।

মন্তব্য

লেখকতথ্য

প্রফেসর ড. রাশিদুল হক
প্রফেসর ড. রাশিদুল হক: সাবেক উপ-উপাচার্য, বরেন্দ্র বিশ্ববিদ্যালয়, রাজশাহী, এবং সাবেক অধ্যাপক, এমোরি বিশ্ববিদ্যালয়, আটলান্টা, যুক্তরাষ্ট্র, ও প্রাণিবিদ্যা বিভাগ, রাজশাহী বিশ্ববিদ্যালয়, বাংলাদেশ।
জনপ্রিয়

টটিপোটেন্সি ও প্লুরিপোটেন্সি: জীবনের উৎস, স্টেম কোষের ক্ষমতা ও আধুনিক চিকিৎসায় সম্ভাবনা

টটিপোটেন্সি ও স্টেম কোষের মহানুভবতা

০১:০৯:৩০ অপরাহ্ন, শনিবার, ১৬ অগাস্ট ২০২৫

টটিপোটেন্সি হলো একটি নিষিক্ত ডিম্বাণুর সেই অনন্য ক্ষমতা, যা থেকে একটি সম্পূর্ণ জীব গড়ে উঠতে পারে। অন্যদিকে প্লুরিপোটেন্সি ভ্রূণীয় স্টেম কোষের বহুমুখী রূপান্তর ক্ষমতা বোঝায়। এই প্রবন্ধে জাইগোট রিপ্রোগ্রামিং, এপিজেনেটিক পরিবর্তন এবং পুনর্জন্ম চিকিৎসায় স্টেম কোষের ভবিষ্যৎ প্রয়োগ বিস্তারিতভাবে আলোচনা করা হয়েছে। এই প্রবন্ধে লেখক চেষ্টা করেছেন কত সহজভাবে টটিপোটেন্সি ও স্টেম কোষ সংক্রান্ত বিষয়টি পাঠকবৃন্দের কাছে সহজবোধ্য করে তুলে ধরা যায়। আর, প্রবন্ধটি বোধগম্যের সুবিধার্থে বিশেষ কিছু ডিএনএ- ও জিন-সম্পর্কিত শব্দ বা উপাদান প্রবন্ধটির শেষে নোট আকারে বর্ণনা করেছেন তিনি।


সারাংশ

অন্টোজেনি বা ভ্রূণীয় বিকাশ একটি একক নিষিক্ত কোষ বা জাইগোট থেকে শুরু হয়। প্রাথমিক ভ্রূণের জাইগোট এবং প্রতিটি প্রাথমিক ব্লাস্টোমেয়ারের সমগ্র জীবের মধ্যে বিকশিত হওয়ার সম্ভাবনা রয়েছে, অর্থাৎ দেহের যেকোনো কোষ তারা তৈরি করতে সক্ষম- কোষের এই অসাধারণ ক্ষমতাটিকে বলা হয় টোটিপোটেনসি। বিকাশের সাথে সাথে, পৃথক ব্লাস্টোমেয়ারের সামগ্রিক বিকাশের সম্ভাবনা বা টোটিপোটেনসি ধীরে ধীরে হ্রাস পায়, যার ফলে পরবর্তীকালে প্লুরিপোটেন্ট, মাল্টিপোটেন্ট, অলিগোপোটেন্ট, ইউনিপোটেন্ট এবং অবশেষে প্রান্তিক সোমাটিক বা দেহ কোষ তৈরি হয়। তবে, সোমাটিক কোষের বিকাশের সম্ভাবনা কৃত্তিমভাবে দেহের যেকোনো কোষ থেকে সরাসরি পুনঃপ্রোগ্রামিংয়ের মাধ্যমে প্লুরিপোটেন্ট অবস্থায় পুনরুদ্ধার করা যেতে পারে।

বিষয়: চিকিৎসা বিজ্ঞান, জিনবিজ্ঞান, অণুপ্রাণ বিজ্ঞান, ডিএনএ, জীববিদ্যা, ভ্রূণবিদ্যা, টোটিপোটেন্সি, প্লুরিপোটেন্সি, স্টেম কোষ


ভূমিকা

একটি একক নিষিক্ত কোষ দ্বারা পুরো দেহের বিশেষায়িত টিস্যু এবং অঙ্গসহ একটি জটিল জীবে বিকশিত হওয়ার এক বিস্ময়কর যাত্রা এই প্রবন্ধে আলোচিত হয়েছে। এই যাত্রায়, দুটি গুরুত্বপূর্ণ ধরনের ভ্রূণীয় কোষের ক্ষমতা সম্পর্কে আলোচনা করেছি, যেমন কোষের টোটিপোটেন্সি এবং প্লুরিপোটেন্সি, যা ভ্রূণীয় বিকাশ এবং পুনর্জন্মমূলক চিকিৎসায় বেশ তাৎপর্যপূর্ণ। জীবনের উৎপত্তির সময়, নিষিক্ত ডিম্বাণু বা জাইগোট এবং বিকাশমান ভ্রূণের প্রাথমিক কোষগুলি টোটিপোটেন্সি প্রদর্শন করে, যা সর্বোচ্চ স্তরের শক্তি। এর অর্থ হল, একটি টোটিপোটেন্ট কোষ প্লাসেন্টাসহ সমস্ত প্রয়োজনীয় টিস্যু এবং অঙ্গসহ একটি সম্পূর্ণ জীবের জন্ম দিতে পারে। এরা সর্বতোমুখী প্রতিভার অধিকারী। এই সহজাত ক্ষমতা মানব বিকাশের প্রাথমিক পর্যায়ে এবং ফলস্বরূপ, প্রজননের মাধ্যমে একটি প্রজাতির ধারাবাহিকতার জন্য অপরিহার্য। বিকাশের অগ্রগতির সাথে সাথে, কোষগুলি ধীরে ধীরে তাদের সর্বব্যাপী টোটিপোটেন্সি হারায় এবং রূপান্তরিত হয় সীমিত ভিন্নমাত্রায়, তবুও অত্যন্ত বহুমুখী অবস্থায়, যা প্লুরিপোটেন্সি নামে পরিচিত। প্লুরিপোটেন্ট স্টেম কোষ, যেমন ব্লাস্টোসিস্টের অভ্যন্তরীণ কোষস্তর বা ভ্রূণীয় স্টেম সেল (ESC) এবং প্ররোচিত প্লুরিপোটেন্ট স্টেম কোষ (iPSC) দ্বারা উদাহরণস্বরূপ, তিনটি ভ্রূণীয়স্তরের (এক্টোডার্ম, মেসোডার্ম এবং এন্ডোডার্ম) মধ্যে প্রায় যেকোনো কোষের মধ্যে পার্থক্য করতে পারে, যা শেষ পর্যন্ত শরীরের সমস্ত টিস্যু এবং অঙ্গগুলির জন্ম দেয়। তবে, টোটিপোটেন্ট কোষের বিপরীতে, তারা প্লাসেন্টার মতো অতিরিক্ত ভ্রূণীয় কাঠামো তৈরি করতে পারে না। এই অসাধারণ কোষগুলির স্ব-পুনর্নবীকরণ এবং পার্থক্য করার ক্ষমতা তাদের অণুপ্রাণ বিজ্ঞান ও চিকিৎসা বিজ্ঞানে অমূল্য হাতিয়ার করে তুলেছে, যা কোষের ভাগ্য সিদ্ধান্ত এবং অঙ্গ গঠনের মতো মৌলিক প্রক্রিয়াগুলির অন্তর্দৃষ্টি প্রদান করে। 

জাইগোটে এপিজিনগত পরিবর্তন এবং টোটিপোটেন্সি অর্জন

যদিও জিনগত কোড বা তথ্য হল উত্তরাধিকারের প্রাথমিক মাধ্যম, তবুও ক্রমবর্ধমান প্রমাণ থেকে জানা যাচ্ছে যে, এপিজিনগত প্রক্রিয়াগুলি, যেমন ডিএনএ মিথিলেশন এবং হিস্টোন পরিবর্তন, প্রজন্মের মধ্যে তথ্য এবং বৈশিষ্ট্য প্রেরণে যথেষ্ট ভূমিকা পালন করে। ডিএনএ-র এপিজিনগত পরিবর্তন জননকোষ (শুক্রাণু বা ডিম) ও জাইগোট উভয়ের মধ্যেই প্রতিষ্ঠিত হতে হয়। গ্যামেট (শুক্রাণু ও ডিম্বাণু) বিকাশের সময়, এই কোষগুলিতে জিনের প্রকাশ নিয়ন্ত্রণ করার জন্য এবং প্রাথমিক ভ্রূণের বিকাশকে প্রভাবিত করার জন্য নির্দিষ্ট এপিজেনেটিক চিহ্ন স্থাপন করা হয়। ডিএনএ মিথিলেশন এবং হিস্টোন পরিবর্তনসহ এই পরিবর্তনগুলি জাইগোটে প্রেরণ করা হয়, যেখানে পরবর্তীতে আরও পুনঃপ্রোগ্রামিং এবং নতুন এপিজেনেটিক প্যাটার্ন স্থাপন করা হয়। 

একটি কোষ বিভাজিত হয়ে সৃষ্টি করে সমজাতীয় কোষসমষ্টির। তবে একটি কোষ যখন তার বিভাজনের মাধ্যমে তৈরি করে ভিন্ন জাতীয় কোষ ও টিস্যু, তখন তার মধ্যে গড়ে উঠে জিনগত এক বিশেষ ক্ষমতা — সে ক্ষমতাই হচ্ছে কোষটির টোটিপোটেন্সি এবং কোষটিকে বলা হয় টোটিপোটেন্ট- যা এই প্রবন্ধের ভূমিকায় উল্লেখ করেছি। মানবভ্রূণ বিকাশের প্রথম পর্যায়ে, বিশেষ করে ব্লাস্টোমেয়ার (৪-কোষ বিশিষ্ট) পর্যায় পর্যন্ত, জাইগোট থেকে প্রাপ্ত কোষগুলি টোটিপোটেন্সি ধরে রাখে। পরবর্তীতে, কোষগুলি পার্থক্য এবং নির্দিষ্ট লক্ষ্যের (যেমন দেহের বিভিন্ন অঙ্গ সৃষ্টি করার লক্ষ্য) উপযোগী হতে শুরু করায় এই টোটিপোটেন্সি ধীরে ধীরে হারিয়ে যায়। মূলত, যদিও উদ্ভিদের তুলনায় বেশিরভাগ প্রাণীর মধ্যে টোটিপোটেন্সির পরিধি সীমিত, বলা যায় এটি প্রাণী বিকাশের শুধুমাত্র প্রাথমিক পর্যায়ের একটি গুরুত্বপূর্ণ বৈশিষ্ট্য।

‘জাইগোট রিপ্রোগ্রামিং’ হল এমন একটি প্রক্রিয়া যেখানে একটি নিষিক্ত ডিম্বাণু (জাইগোট) তার কোষীয় এবং আণবিক গঠনে উল্লেখযোগ্য পরিবর্তনের মধ্য দিয়ে যায়, যার মধ্যে রয়েছে এপিজিনগত পরিবর্তন এবং ডিম্বাণুর নিজস্ব মেসেঞ্জার আরএনএ (mRNA)গুলিকে ভেঙে দিয়ে জাইগোট-জিনগুলির প্রকাশ, যা অত্যন্ত বিশেষায়িত মাতৃ-অবস্থা থেকে একটি নতুন জীবে বিকশিত হতে সক্ষম টোটিপোটেন্ট ও প্লুরিপোটেন্ট অবস্থায় রূপান্তরিত করে। এর মধ্যে জাইগোট-জিনোমের সক্রিয়করণ এবং মাতৃ-mRNA এবং প্রোটিনের অবক্ষয় উভয়ই জড়িত। পূর্বেই উল্লেখ করেছি, শুক্রাণু এবং ডিম্বাণুর সংমিশ্রণ দ্বারা জাইগোট গঠিত হয়, যার প্রতিটির নিজস্ব বিশেষায়িত জিনগত এবং এপিজিনগত প্রোফাইল রয়েছে, বিশেষকরে এপিজেনেটিক চিহ্ন, যেমন ডিএনএ মিথিলেশন। জাইগোটের পুনঃপ্রোগ্রামের মধ্য দিয়ে এই পূর্ব-বিদ্যমান প্যাটার্নগুলিকে মুছে ফেলা বা পরিবর্তন করা অপরিহার্য, যা জাইগোটকে টোটিপোটেন্ট (বহির্ভ্রূণ টিস্যুসহ শরীরের সমস্ত ধরনের কোষ গঠনে সক্ষম) হতে দেয়। সর্বব্যাপী ডিএনএ জুড়ে ডিমিথিলেশনের এই গুরুত্বপূর্ণ কাজটি করে বিশেষ এক এনজাইম, টেন-ইলেভেন ট্রান্সলোকেশন (TET) নামক একটি এনজাইম, বিশেষ করে TET3। মাতৃ চিত্রকলা মুছে ফেলে জাইগোট জিনোমে নতুন করে মিথিলেশন-চিত্রকলা সুচারুরূপে সৃষ্টির ক্ষেত্রে ডিএনএ মিথাইলট্রান্সফারেজ (DNMT) নামক আরেকটি এনজাইম, বিশেষকরে  DNMT3A and DNMT3B, জড়িত থাকে (Ma JY, Protein Cell, 5, 2014)।

জাইগোটে পুনঃপ্রোগ্রাম করতে যে তিনটি প্রক্রিয়া প্রাথমিকভাবে খুব গুরুত্বপূর্ণ তা হল: 

১) জাইগোট জিনোমের জিনগুলিকে সক্রিয় ও প্রকাশযোগ্য করার জন্য পৈতৃ (শুক্রাণু থেকে প্রাপ্ত) ও মাতৃ ডিএনএ থেকে সর্বব্যাপী মিথাইল গ্রুপ (CH3, এপিজেনেটিক চিহ্ন) অপসারিত হয়। এই প্রক্রিয়া-টিকে বলা হয় ডিমিথিলেশন। এই প্রক্রিয়ায়, পিতামাতার জিনোম থেকে (শুক্রাণু ও ডিম্বাণুর ডিএনএ) এই “এপিজেনেটিক স্মৃতি”, যার মধ্যে ডিএনএ মিথাইলেশনও রয়েছে, মুছে ফেলে হয়, যেন জাইগোটকে নতুন করে একটি নতুন জীবন সৃষ্টি করবার সুযোগ বা জিনগত পরিবেশ দেয়া হয়। মূলত, ডিমিথিলেশন জাইগোট-জিনোমের পুনঃপ্রোগ্রামিংয়ের একটি গুরুত্বপূর্ণ পদক্ষেপ, যা জাইগোটকে একটি নতুন এপিজেনেটিক পরিচয় স্থাপন ক’রে একটি বিকাশমূলক প্রোগ্রাম শুরু করতে দেয়। 

২) হিস্টোন প্রোটিনের (যা ডিএনএ-কে একধরনের মোড়কে বা প্যাকেজে রাখে) পরিবর্তন, যেমন এসিটিলেশন (এসিটিল গ্রুপের, CH3CO-, সংযোজন) এবং মিথিলেশন, জাইগোট জিনোম সক্রিয়করণে গুরুত্বপূর্ণ ভূমিকা পালন করে, যা প্রাথমিক ভ্রূণজনিত ক্ষেত্রে একটি গুরুত্বপূর্ণ বিকাশমূলক মাইলফলক। এই প্রক্রিয়া চলাকালীন, উত্তরাধিকারসূত্রে প্রাপ্ত মাতৃ/ডিম্বাণু জিনগত উপাদান ধীরে ধীরে জাইগোটের নিজস্ব জিনগত উপাদান দ্বারা প্রতিস্থাপিত হয়। এই রূপান্তরের সময়, হিস্টোন প্রোটিনের পরিবর্তন অপরিহার্য, যা ক্রোমাটিনের (ডিএনএ এবং প্রোটিন) গঠন এবং জিনের প্রকাশ নিয়ন্ত্রণ করে। বিশেষকরে, H3K4me3 (হিস্টোন—৩ প্রোটিনের লাইসিন অবশিষ্টাংশে তিনটি মিথাইল গ্রুপের সংযোজন) এর মতো নির্দিষ্ট হিস্টোন পরিবর্তনগুলি, বিকাশমূলক জিনের সক্রিয়করণের সাথে সম্পর্কিত, যা ভ্রূণ-বিকাশের সাথে জড়িত প্রয়োজনীয় জিনের সঠিক প্রকাশ নিশ্চিত করে। এই পরিবর্তন আবশ্যকীয়, যাতে করে জিন প্রকাশের লক্ষ্যে ক্রোমাটিনকে ট্রান্সক্রিপশন ফ্যাক্টরগুলির (যেমন DUX4, TPRX পরিবার, OBOX পরিবার) দ্বারা কমবেশি অভিগম্য করে তোলে। 

৩) মাতৃ (ডিম্বাণু) মেসেঞ্জার আরএনএ এবং প্রোটিনগুলি ক্ষয়প্রাপ্ত হয়, যখন জাইগোটের জিনোম নিজস্ব প্রতিলিপন/ট্রান্সক্রিপশন, তথা mRNA-সংশ্লেষণ প্রক্রিয়ায় সক্রিয় হয়। গবেষণায় দেখা যায় যে, এই রূপান্তরটি ঘটা শুরু হয় ভ্রূণের এক-কোষ পর্যায় থেকে, কিন্তু আট-কোষ পর্যায়ে (নিষিক্তকরণের প্রায় ৬৮ ঘন্টা পরে) জাইগোট জিনোমের উল্লেখযোগ্য জিন সক্রিয়করণ ঘটে (Lee MT, Annu Rev Cell Dev Biol, 2014), যখন মাতৃ-জিনোমের পরিবর্তে জাইগোট বা ডিপ্লয়েড ভ্রূণ জিনোমের একচেটিয়া নিয়ন্ত্রণে আসে। এই গুরুত্বপূর্ণ রূপান্তরের মধ্যে মাতৃ উপাদানগুলি থেকে বিকাশগত নিয়ন্ত্রণ গ্রহণ করে জাইগোটিক জিনোম। বলে রাখা প্রয়োজন, মাতৃ/ডিম্বাণু মেসেঞ্জার-আরএনএ ও প্রোটিনগুলির বিলুপ্তি বা অবক্ষয়ের জন্য নির্দিষ্ট কিছু প্রোটিন ও মাইক্রো-আরএনএ (miRNA/miR) জড়িত, যেমন Lsm1-7-Pat1 প্রোটিন কমপ্লেক্স, Dcp1-Dcp2 প্রোটিন কমপ্লেক্স, এক্সোন্যুক্লিয়েজ Xrn1 এবং মাইক্রো-আরএনএ miR-৩০২ এবং miR-৩৭২। পুনঃপ্রোগ্রাম প্রক্রিয়ায় কোথাও ব্যাঘাত ঘটলে বিকাশগত ত্রুটি এবং রোগের কারণ হতে পারে।

টোটিপোটেন্সি অর্জনে যেসব জিন মূলত দায়ী:

টোটিপোটেন্সি-সম্পর্কিত জিন হল সেসব জিন, যার প্রক্রিয়ায় একটি একক কোষের ভ্রূণ এবং বহির্ভ্রূণ (প্লাসেন্টা) উভয় টিস্যুসহ একটি সম্পূর্ণ জীবে বিকশিত হওয়ার সম্ভাবনা তৈরি হয়। মূল জিনগুলির মধ্যে অন্তর্ভুক্ত রয়েছে সদ্যোজাত জাইগোট-টির সক্রিয়করণ (জাইগোটিক জিনোম অ্যাক্টিভেশন-ZGA) প্রক্রিয়ার সাথে জড়িত জিন, যেমন হোমিওবক্স ট্রান্সক্রিপশন ফ্যাক্টর, DUX (ডাবল হোমিওবক্স) এবং এর মানব সমরূপ DUX4 (ডাবল হোমিওবক্স ৪), এবং মানব ডিএনএ-তে অন্তর্নিবিষ্ট রেট্রোভাইরাস জিন, HERVL (হিউম্যান এন্ডোজেনাস রেট্রোভাইরাসএল)। এসব জিন, এপিজিনগত ফ্যাক্টরগুলির সাথে, প্রাথমিক ভ্রূণ বিকাশের সময় টোটিপোটেন্সি থেকে প্লুরিপোটেন্সি (প্লাসেন্টা ছাড়া, দেহের অন্যান্য অঙ্গ তৈরি করার ক্ষমতা)তে রূপান্তর নিয়ন্ত্রণ করে। নিষিক্তকরণের ৪-৫ দিন পরেই সৃষ্টি হয় মানব ভ্রূণের ব্লাস্টোসিস্ট (blastocyst), যার অভ্যন্তরীণ কোষগুলি তৈরি করে প্রাথমিক স্টেম সেল। সেগুলিই হচ্ছে আদর্শ প্লুরিপোটেন্ট কোষ যা ভ্রূণস্তরের যেকোনোটি (এক্টোডার্ম, মেজোডার্ম ও এন্ডোডার্ম) তৈরি করতে সক্ষম। আর, ব্লাস্টোসিস্টের বহিঃস্তর ট্রোফোব্লাস্ট তৈরি করে প্লাসেন্টা।

DUX4 জিনটি জাইগোটের জিনোম (নবজাত ভ্রূণের জিনোম) সক্রিয় করার জন্য অত্যন্ত গুরুত্বপূর্ণ। এই জিনটি ক্রোমোজোম ৪ এর সাবটেলোমেরিক অঞ্চলে (টেলোমেয়ার সংলগ্ন) একটি D4Z4 ম্যাক্রোস্যাটেলাইট রিপিট আকারে অবস্থিত। DUX4 প্রোটিন অনেক জিনের একটি ট্রান্সক্রিপশনাল অ্যাক্টিভেটর। DUX4 সাধারণত ভ্রূণের বিকাশের প্রাথমিক পর্যায়ে প্রকাশিত হয়, যা জাইগোটের জিনোম (নিষেকের পরে ভ্রূণের জিনোম) সক্রিয়করণে ভূমিকা পালন করে। DPPA2 (ডেভেলপমেন্টাল প্লুরিপোটেন্সি অ্যাসোসিয়েটেড ২) এবং DPPA4 জিনগুলিও জাইগোটের জিনোম সক্রিয়করণের প্রাথমিক পর্যায়ে জড়িত, এবং তাদের কার্যকলাপ DUX প্রকাশের সাথে প্রাসঙ্গিক।

ZSCAN4 এবং অন্যান্য ২-কোষ-নির্দিষ্ট জিন DUX এর সাথে আবদ্ধ হয়, তাদের সক্রিয় করে এবং টোটিপোটেন্ট অবস্থায় অবদান রাখে। ZSCAN4 টেলোমেয়ার রক্ষণাবেক্ষণ, ডিএনএ মেরামত এবং ক্রোমাটিন পুনর্নির্মাণের সাথে জড়িত। এছাড়া, HERVL জিনটি টোটিপোটেন্ট কোষেও ঢের প্রকাশ পায়। এগুলি নিয়ন্ত্রক উপাদান হিসেবে কাজ করতে পারে, কাছাকাছি জিনের ট্রান্সক্রিপশনকে প্রভাবিত করে। তারা জাইগোট জিনোম সক্রিয়তায় ভূমিকা পালন করে এবং DUX4 দ্বারা আবদ্ধ হতে পারে। অধিকন্তু, LINE-1 উপাদান/এলিমেন্ট (একমাত্র স্বয়ংক্রিয় এবং প্রোটিন-কোডিং ট্রান্সপোজেবল উপাদান) হল অন্য একধরনের ‘রেট্রোট্রান্সপোজন’ উপাদান যা টোটিপোটেন্ট কোষেও অত্যন্ত প্রকাশিত হয় এবং DUX এবং LINE জিনদুটি একে অপরকে নিয়ন্ত্রণ করে। Dux4 নিয়ন্ত্রণ করার জন্য KAP1/নিউক্লিওলিনের মতো প্রোটিন নিয়োগ করতে পারে। এছাড়াও, প্লুরিপোটেন্সি ও টোটিপোটেন্সি বজায় রাখার জন্য এবং কোষের ভাগ্য নিয়ন্ত্রণ করার জন্য OCT3/4, SOX2, ZNF675, LSM1, NANOG প্রোটিন এবং Wnt/β-ক্যাটেনিন সংকেতপথ জড়িত।

টোটিপটেন্ট এবং স্টেম কোষের মধ্যে পার্থক্য কোথায়?

টোটিপোটেন্ট এবং ভ্রূণীয় পূর্বজ কোষ বা স্টেম কোষ উভয়েরই বিভিন্ন ধরনের কোষে বিভক্ত হওয়ার সম্ভাবনা রয়েছে, তবে তাদের বিকাশের ক্ষমতা আলাদা। জাইগোট বা ভ্রূণীয় ৪-কোষ পর্যায়ের ব্লাসটোমেয়ার,  এমনকি ১৬-কোষ বিশিষ্ট মরুলা (morula) দশার মতো টোটিপোটেন্ট কোষগুলি শরীরের যেকোনো ধরনের কোষে বিভক্ত হতে পারে, যার মধ্যে প্লাসেন্টার মতো বহির্ভ্রূণ টিস্যুও অন্তর্ভুক্ত, যেখানে স্টেম কোষ বা প্লুরিপোটেন্ট কোষগুলি শরীরের সকল ধরনের কোষে বিভক্ত হতে পারে বটে, কিন্তু বহির্ভ্রূণ বা প্লাসেন্টা টিস্যুতে নয়- এটাই হল তাদের মূল পার্থক্য। প্রসঙ্গত, টোটিপোটেন্সি শুধুমাত্র প্রাথমিক ভ্রূণ কোষের একটি বৈশিষ্ট্য, যা বিকাশের অগ্রগতির সাথে সাথে ধীরে ধীরে হারিয়ে যায় এবং রূপান্তরিত হয় প্লুরিপোটেন্ট স্টেম কোষে।

টোটিপোটেন্সি ব্যতিরেকে, ভ্রূণীয় বিকাশমান কোষগুলিকে বিভেদের ক্ষমতা বা সীমাবদ্ধতার উপর ভিত্তি করে বিভিন্ন শ্রেণিতে ভাগ করা হয়েছে, যেমন প্লুরিপোটেন্ট, মাল্টিপোটেন্ট এবং অলিগোপোটেন্ট। অর্থাৎ, একটি ভ্রূণ যত বিকশিত হতে থাকে, যত অগ্রসর হতে থাকে, সেই কোষগুলির ভিন্ন জাতীয় কোষ তৈরি করার ক্ষমতা ততটা কমতে থাকে। উদাহরণস্বরূপঃ পূর্বেই উল্লেখ করেছি, ডিম্বাণু নিষিক্তকরণের ৪-৫ দিন পরেই সৃষ্টি হয় মানব-ভ্রূণের ব্লাস্টোসিস্ট দশা, যার অভ্যন্তরীণ কোষগুলি তৈরি করে প্রাথমিক স্টেম কোষ। এতে প্রায় ১৫০টি কোষ থাকে। এই ভ্রূণীয় স্টেম কোষগুলি-ই হচ্ছে আদর্শ প্লুরিপোটেন্ট কোষ, যা তিনটি ভ্রূণস্তরের (এক্টোডার্ম, মেসোডার্ম ও এন্ডোডার্ম) যেকোনোটি তৈরি করতে সক্ষম। অর্থাৎ, এরা শরীরের যেকোনো ধরনের কোষে ও টিস্যুতে পরিণত হতে পারে। এগুলি ভ্রূণ অবস্থায় ক্ষতিগ্রস্ত টিস্যু এবং অঙ্গগুলির পুনর্জন্ম বা মেরামতের জন্য ব্যবহৃত হয় (ছবি দেখুন)। 
টোটিপোটেন্ট এবং ভ্রূণীয় পূর্বজ কোষ বা স্টেম কোষ উভয়েরই বিভিন্ন ধরনের কোষে বিভক্ত হওয়ার সম্ভাবনা রয়েছে, তবে তাদের বিকাশের ক্ষমতা আলাদা।

ভ্রূণবিকাশে আরও কিছুটা অগ্রসর হলে দেখা যায়, মেসোডার্ম থেকে উদ্ভুত অস্থিমজ্জার হেমাটোপোয়েটিক (hematopoietic) স্টেম কোষ, যাকে বলা হয় পূর্বজ (primordial) কোষ, যার থেকে তৈরি হয় বিভিন্ন ধরনের রক্ত কোষ/কণিকা, যেমন লিম্ফোসাইট, নিউট্রোফিল, মোনোসাইট ইত্যাদি, কিন্তু এই কোষগুলি মস্তিস্ক, অস্থি বা অন্যান্য কোষে রূপান্তরিত হবার সক্ষমতা রাখে না- অর্থাৎ, এদের কোষীয় ক্ষমতা বা সীমা প্লুরিপোটেন্ট কোষগুলির থেকে কমে আসে। এদের বলা হয় মাল্টিপোটেন্ট কোষ। এরকম আরও মাল্টিপোটেন্ট স্টেম কোষ হচ্ছে এন্ডোথেলীয় (endothelial) স্টেম কোষ (রক্তনালির পুনর্জন্মে অবদান রাখে), মেসেনকাইম স্টেম কোষ (তৈরি করে হাড়, তরুণাস্থি এবং চর্বি কোষ) ও নার্ভিয় স্টেম কোষ (স্নায়ুতন্ত্র গঠনকারী নিউরন এবং গ্লিয়া তৈরির জন্য দায়ী)। সক্ষমতা আরও সংকুচিত হয়ে আসলে লিম্ফয়েড বা মাইলয়েড স্টেম কোষগুলি, যারা শুধুমাত্র তৈরি করতে সক্ষম রক্তকোষ বি-লিম্ফোসাইট ও টি-লিম্ফোসাইট, তারা হল অলিগোপোটেন্ট কোষ; এবং, সবথেকে দুর্বলতম সক্ষমতার অধিকারী, যাদের বলা ইউনিপোটেন্ট কোষ, তাদের মধ্যে পার্থক্য করার ক্ষমতা সবচেয়ে কম, তারা শুধুমাত্র একধরনের কোষের মধ্যে পার্থক্য করতে সক্ষম।  উদাহরণস্বরূপ, পেশি স্টেম কোষ, যা শুধুমাত্র পেশি কোষ তৈরি করতে পারে। এগুলি প্রাপ্তবয়স্ক স্টেম সেল। শুধু পেশিটিস্যু নয়, এরকম আরও প্রাপ্তবয়স্ক ইউনিপোটেন্ট স্টেম কোষ আমাদের বিভিন্ন অঙ্গে বিদ্যমান, এমনকি রেটিনার মধ্যেও, যেগুলি সেই টিস্যুর রক্ষণাবেক্ষণ এবং মেরামত করতে সহায়তা করতে পারে। 

কিছু ব্যতিক্রম আছে। প্রাকৃতিকভাবে কিছু নিম্নগ্রুপের প্রাণী, যেমন হাইড্রা (hydra)-র ইন্টারস্টিসিয়াল কোষ (বিভিন্ন টিস্যুর ফাঁকা স্থানে পাওয়া কোষগুলি) বা কিছু ফিতাকৃমির (যেমন প্লানারিয়া গ্রুপের প্রাণী) কোষ প্রয়োজনবোধে দেহের যেকোনো কোষেই রূপান্তরিত হতে পারে, এমনকি পূর্ণাঙ্গ দেহ। উদ্ভিদের প্রোক্যাম্বিয়াম কোষগুলিও একধরনের টোটিপটেন্ট কোষ, যা প্রয়োজন অনুসারে কখনো ক্যাম্বিয়াম, কখনো জাইলেম বা ফ্লোয়েম কোষে রূপান্তরিত হয়। মানবদেহেও এই বৈশিষ্ট্য আমরা দেখেছি, তবে সেই টোটিপোটেন্সি পর্যায়ে নয়, যেমন অস্থিমজ্জার স্টেম কোষগুলি প্রয়োজন হলেই দেহের যেকোনো রক্তকণিকায় পরিণত হতে পারে বটে, তবে দেহের অন্য অঙ্গ, যেমন মস্তিষ্ক, হৃদপিন্ড, বা যকৃত গঠন করতে সক্ষম নয়।

বহুল আলোচিত এবং কৌতুহলোদ্দীপক আরও এক জাতীয় স্টেম কোষ হল “কৃত্রিমভাবে প্ররোচিত প্লুরিপোটেন্ট স্টেম কোষ”, যা সাধারণত iPS কোষ বা iPSC (ইন্ডিউস্ড প্লুরিপোটেন্ট স্টেম সেল) হিসেবে পরিচিত (ছবি দেখুন)।
কৃতৃমভাবে প্রবর্তিত
কৃতৃমভাবে প্রবর্তিত পলুরিপোটেন্ট স্টেম কোষ

এই কোষগুলি হল এক ধরনের প্লুরিপোটেন্ট স্টেম কোষ যা সরাসরি প্রাপ্তবয়স্ক সোমাটিক/দেহ কোষ থেকে তৈরি করা যেতে পারে। মূলত, বিজ্ঞানীরা রোগীর নিজস্ব কোষ (যেমন ত্বক বা রক্তকণিকা) নিতে পারেন এবং ভ্রূণীয় স্টেম কোষের মতো আচরণ করার জন্য তাদের পুনরায় প্রোগ্রাম করতে পারেন, যাদের শরীরের যেকোনো ধরনের কোষে পার্থক্য করার ক্ষমতা রয়েছে। সোমাটিক কোষে নির্দিষ্ট ট্রান্সক্রিপশন ফ্যাক্টর (যেমন- Oct4, Sox2, Klf4 ও c-Myc) প্রবর্তন ক’রে কার্যকরভাবে তাদের বিশেষায়িত মূল জিনের প্রকাশ বন্ধ করা হয় এবং প্লুরিপোটেন্সির সাথে সম্পর্কিত জিনগুলি চালু ক’রে এটি অর্জন করা হয়। প্ররোচিত এই কোষগুলি প্রাকৃতিকভাবে প্লুরিপোটেন্ট ভ্রূণীয় স্টেম কোষগুলির বৈশিষ্ট্য অর্জন করে, যা পূর্বে ভ্রূণীয় স্টেম কোষের জন্য-ই একচেটিয়া বলে মনে করা হত। এই পদ্ধতিতে, ইঁদুরের ফাইব্রোব্লাস্ট কোষগুলিকে প্লুরিপোটেন্ট ক’রে অণুপ্রাণ বিজ্ঞানে এক বিপ্লব এনে দিয়েছিলেন বিজ্ঞানী শিনিয়া ইয়ামানাকা ও জন গার্ডন (Cell 126, 2006)। তাঁদের সেই যুগান্তকারী আবিষ্কারের জন্য ২০১২ সালে তাঁরা নোবেল পুরস্কারে ভূষিত হন। iPSCs প্রযুক্তি প্রয়োগ করে অণুপ্রাণ বিজ্ঞান ও চিকিৎসা বিজ্ঞানে এক অভূতপূর্ব অগ্রগতি হয়েছে। রোগ অধ্যয়ন এবং সম্ভাব্য থেরাপি বিকাশের জন্য একটি নতুন পথ প্রদান করেছে। বর্তমান এই আর্টিকেলটির সঙ্গে প্রাসঙ্গিক, ২০২৩ সালে আমার একটি লেখা  “রেটিনার অবক্ষয়জনিত দৃষ্টিহীনতা এবং প্লুরিপোটেন্ট স্টেম কোষ থেরাপি” পড়লে উপকৃত হবেন (www.bishleshon.com/7917)।


ট্রান্সডিফারেন্সিয়েশন বা কোষ আন্তঃরূপান্তর এবং মানুষের মধ্যে সীমাবদ্ধতা

সাধারণভাবে, অমেরুদণ্ডী প্রাণীদের মধ্যে অনেকের অনন্য এক বিকাশমূলক ক্ষমতা রয়েছে। সেই বৈশিষ্ট্যকে বলা হয় ট্রান্সডিফারেন্সিয়েশন বা কোষ আন্তঃরূপান্তর, অর্থাৎ প্রাপ্তবয়স্ক অবস্থায় দেহের একধরনের কোষ থেকে ভিন্ন-ধরনের কোষ তৈরি বা টিস্যু প্রতিস্থাপনের বিষয়টি বুঝায়। যেমন, এক ধরনের জেলিফিশ (Turritopsis dohrnii) তার জীবনচক্রের উপর একটি জৈবিক “রিসেট বোতাম” চাপ দিয়ে বার্ধক্যজনিত মৃত্যুকে এড়িয়ে যায়,  ফিরে যায় তার পরিণত পর্যায়  (মেডুসা) থেকে কিশোর পর্যায়ে (পলিপ) এবং এই প্রক্রিয়ার পুনরাবৃত্তি ঘটিয়ে অর্জন করে অমরত্ব। সেই প্রক্রিয়ায়, অবিশ্বাস্যভাবে একটি প্লানারিয়া (ফিতা কৃমি) গ্রুপের প্রাণীর যেকোনো খণ্ডিত অংশ থেকে পূর্ণাঙ্গ দেহ তৈরির চমকপ্রদ ক্ষমতা রয়েছে। তবে, অমেরুদণ্ডী সরল জীবের তুলনায় মেরুদণ্ডী প্রাণীদের মধ্যে এই ধরনের কোষ আন্তঃরূপান্তরের সম্ভাবনা সাধারণত সীমিত, তবে কিছু প্রাণীদের মধ্যে রয়েছে বিস্ময়কর ক্ষমতা। যেমন, জেব্রাফিশ তাদের পাখনা, হৃদপিণ্ড এবং স্নায়ুতন্ত্রের অংশসহ বিভিন্ন টিস্যু এবং অঙ্গ পুনর্জন্ম করার ক্ষমতা রাখে। একধরনের কিলিফিশ, ফিরোজা কিলিফিশ (Nothobranchius furzeri), তার ভ্রূণ বা যৌবন পর্যায়ে বিকাশ স্থগিত রেখে তাদের তারুণ্যকে ধরে রাখে। এছাড়া, ‘নিউট’ উভচর প্রাণীগুলির (একধরনের স্যালামান্ডার) বেশিরভাগ টিস্যু পুনর্জন্ম করতে সক্ষম, যার মধ্যে একটি হল তাদের চোখের আইরিশ টিস্যু দ্বারা প্রতিস্থাপিত হয় ক্ষতিগ্রস্ত লেন্স। স্যালামাণ্ডার গ্রুপের তরুণসুলভ বাহ্যিক ফুলকা এবং লেজবিশিষ্ট ‘অ্যাক্সোলোটল’ ট্যাডপোল বা লার্ভা তাদের হারিয়ে যাওয়া বা ক্ষতিগ্রস্ত অঙ্গ এবং এমনকি, তাদের মস্তিষ্কের অংশগুলিও পুনরুত্থিত করার এক অনন্য ক্ষমতার অধিকারী। এরা প্রাপ্তবয়স্ক আকারে রূপান্তরিত হয় না, বাঁচে ১৫ থেকে ২০ বছর। পক্ষান্তরে, হারানো অঙ্গ-প্রত্যঙ্গ পুনর্নবায়ন করা বা বার্ধক্যকে তারুণ্যে ফিরিয়ে আনতে পারার মতো অসাধারণ বৈশিষ্ট্য বা ক্ষমতা মানুষের মধ্যে না থাকলেও,  আমাদের দেহের কিছু টিস্যু এবং অঙ্গ মেরামত এবং প্রতিস্থাপন করার ক্ষমতা রয়েছে। যেমন, ত্বকের বাইরের স্তর, এপিডার্মিস, ক্রমাগত নিজেকে পুনর্নবীকরণ করে, চুল কাটা বা ঝরে যাওয়ার পরে আবার সেগুলি বৃদ্ধি পায়, বা হারানো আঙুলের নখ ও ডগা পুনরায় বৃদ্ধি পেতে পারে। এছাড়া, মাসিকের সময় জরায়ুর আস্তরণ এন্ডোমেট্রিয়ামের পুনর্জন্ম, অথবা ক্ষতিগ্রস্ত যকৃত তার উল্লেখযোগ্য অংশ থেকে পুনরুত্পাদন করার ক্ষমতায় অসাধারণ।

উপসংহার 

এই প্রবন্ধে টোটিপোটেন্ট এবং প্লুরিপোটেন্ট উভয় স্টেম কোষের গভীর সম্ভাবনা আলোচিত হয়েছে। নিঃসন্দেহে, ভ্রূণ স্টেম কোষ এবং প্ররোচিত প্লুরিপোটেন্ট স্টেম কোষগুলি প্রতিস্থাপন, রোগের প্রক্রিয়া অধ্যয়ন এবং সম্ভাব্য থেরাপি বিকাশের জন্য নির্দিষ্ট কোষের ধরন এবং টিস্যু তৈরিতে উল্লেখযোগ্য প্রতিশ্রুতি দেখিয়েছে- যেখানে এটি পুনর্জন্মমূলক থেরাপি চিকিৎসার ভিত্তিপ্রস্তর হয়ে ওঠে এবং অগণিত রোগীর জীবনকে রূপান্তরিত করে। অনস্বীকার্য সম্ভাবনা থাকা সত্ত্বেও, উল্লেখযোগ্য বাধা রয়ে গেছে, যার মধ্যে রয়েছে প্রাথমিক ভ্রূণ স্টেম কোষ ব্যবহারকে ঘিরে নীতিগত বিবেচনা, স্টেম কোষ পার্থক্যমূলক নিয়ন্ত্রণে চ্যালেঞ্জ এবং টিউমারসৃষ্টির সম্ভাবনা। সেই কারণে, ভবিষ্যতের গবেষণার দিকনির্দেশনাগুলি নির্দেশিত পার্থক্যমূলক প্রোটোকলকে পরিমার্জন, পুনঃপ্রোগ্রামিংয়ের সুরক্ষা ও দক্ষতা বৃদ্ধি, এবং জিনগতভাবে পরিবর্তিত স্টেম কোষ এবং এক্সোসোম (কোষ দ্বারা নিঃসৃত ক্ষুদ্র ভেসিকল বা থলি)-ভিত্তিক থেরাপির মতো উদ্ভাবনী পদ্ধতিগুলি অন্বেষণের উপর দৃষ্টি নিবদ্ধ করা উচিত। এছাড়া, জেলিফিশ, কিলিফিশ বা স্যালামান্ডার প্রাণীগুলি গবেষণার মডেল-জীব হিসেবে গৃহীত হতে পারে, যা মানুষের অঙ্গগুলির পুনর্জন্ম বৃদ্ধি এবং বার্ধক্য-সম্পর্কিত রোগের বিরুদ্ধে লড়াই করবার উপায় খুঁজে বের করার প্রতিশ্রুতি দেয়।  


সাহায্যকারী নোট:

Dcp1-Dcp2 কমপ্লেক্স: এই কমপ্লেক্সটি দুটি প্রোটিন, Dcp1-Dcp2, নিয়ে গঠিত। এই প্রোটিন কমপ্লেক্সটি মেসেঞ্জার আরএনএ (mRNA) থেকে ৫’-ক্যাপ (7-methylguanosine cap/m7G) অপসারণ ক’রে mRNA অবক্ষয়ে গুরুত্বপূর্ণ ভূমিকা পালন করে। Dcp2 হল একটি এনজাইম, যা ৫’-ক্যাপটিকে হাইড্রোলাইজ করার জন্য দায়ী। এই এনজাইমটি  ক্যাপ-কে ভেঙে মুক্ত করে ৭-মিথাইলগুয়ানোসাইন ডাইফসফেট (7mGDP) এবং একটি ৫’-মনোফসফেট mRNA, এবং Dcp1 উল্লিখিত কার্যকলাপকে সহযোগিতা ক’রে ডিক্যাপিং প্রক্রিয়াটিকে আরও দক্ষ করে তোলে। এছাড়া, Dcp1-Dcp2 কমপ্লেক্স এর কার্যকলাপ অন্যান্য প্রোটিন-ফ্যাক্টর দ্বারাও নিয়ন্ত্রিত হয়, যার মধ্যে রয়েছে Edc3, Lsm1-7/Pat1 এবং কিছু মাইক্রো-আরএনএ (miRNA)। সর্বপরি, এই কমপ্লেক্সটি কোষীয় উপাদানগুলির একটি মূল উপাদান যা mRNA স্থিতিশীলতা নিয়ন্ত্রণ ক’রে জিনের প্রকাশ নিয়ন্ত্রণ করে। 

HERVL (হিউম্যান এন্ডোজেনাস রেট্রোভাইরাস-লাইক):  HERVL হল একধরনের ট্রান্সপোজেবল উপাদান, যা মানব ডিএনএ-তে সন্নিবেশিত রেট্রোভাইরাস (HERV) এর বৃহত্তর গ্রুপের অংশ। এই উপাদানগুলি প্রাচীন রেট্রোভাইরাস সংক্রমণের অবশিষ্টাংশ যা লক্ষ লক্ষ বছর আগে মানব জিনোমে সন্নিবেশিত হয়েছিল, এবং এগুলি বংশপরম্পরায় সন্তানদের মধ্যে প্রবাহিত হয়। HERVL উপাদানগুলি বিবর্তনীয় সময়ের সাথে মানুষের জিনোমে সম্ভাব্যভাবে জিনের অভিব্যক্তি এবং নিয়ন্ত্রণকে প্রভাবিত করেছে। যদিও অনেক HERV উপাদান নিষ্ক্রিয়, কিন্তু কিছু কিছু ক্যান্সার, অটোইমিউন রোগ এবং স্নায়বিক ব্যাধিসহ বিভিন্ন রোগের সাথে এরা যুক্ত।  

Lsm1-7-Pat1 কমপ্লেক্স: এই প্রোটিন কমপ্লেক্সটি হলো ইউক্যারিওটিক কোষগুলিতে মেসেঞ্জার আরএনএ (mRNA) ক্ষয়পথের একটি গুরুত্বপূর্ণ উপাদান, বিশেষ করে এই প্রোটিনগুলি ৫’- থেকে ৩’-mRNA অবক্ষয় প্রক্রিয়ায় জড়িত। এই কমপ্লেক্সে Lsm1-7 প্রোটিন (Lsm1, Lsm2, Lsm3, Lsm4, Lsm5, Lsm6, এবং Lsm7) এবং Pat1 প্রোটিনের সমন্বয়ে একটি হেপ্টামেরিক রিং রয়েছে। এটি ডিঅ্যাডিনাইলেশন (পলি-A লেজ অপসারণ) ও mRNA ডিক্যাপিং (৫’-ক্যাপ অপসারণ) উভয়ের সাথে জড়িত। মানব জিনোমে এই কমপ্লেক্সটি অত্যন্ত সংরক্ষিত এবং AU-সমৃদ্ধ উপাদান-মধ্যস্থ ক্ষয় এবং মাইক্রো-আরএনএ (miRNA) নীরবকরণসহ বিভিন্ন mRNA-ক্ষয়পথে ভূমিকা পালন করে। নবজাত ভ্রূণের জাইগোট-জিনোম সক্রিয়করণের সময় মাতৃ-mRNAগুলির অবক্ষয়ের সাথেও জড়িত হলো এই কমপ্লেক্স প্রোটিন।  

D4Z4 repeat: D: DNA বোঝায়। 4: ক্রোমোজোম সংখ্যা (ক্রোমোজোম 4) নির্দেশ করে যেখানে এটি অবস্থিত। Z: এর সমান্তরাল পুনরাবৃত্তিমূলক প্রকৃতি নির্দেশ করে। 4: ঐতিহাসিকভাবে এই অঞ্চলের সাথে সম্পর্কিত একটি নির্দিষ্ট ক্লোন বা মার্কার ক্রম নির্দেশিত।


ট্রান্সক্রিপশন ফ্যাক্টর (Transcription factor, TF): একটি জিনের নির্দিষ্ট ডিএনএ অনুক্রমে আবদ্ধ হয়ে ডিএনএ থেকে মেসেঞ্জার আরএনএ (mRNA)-তে জিনগত তথ্যের প্রতিলিপন (transcription) এর হার নিয়ন্ত্রণ করে এক বা একাধিক ট্রান্সক্রিপশন ফ্যাক্টর। এই ফ্যাক্টরগুলি হলো প্রোটিন। সাধারণতঃ TF-গুলি আবদ্ধ হয় একটি জিনের নিয়ন্ত্রক অঞ্চলের নির্দিষ্ট প্রমোটর (promoter) বা এনহ্যান্সার (enhancer) অণুক্রমে, যা রেসপন্স এলিমেন্ট বা cis-element নামে অভিহিত; আর, ট্রান্সক্রিপশন ফ্যাক্টর হচ্ছে ট্রান্স-এলিমেন্ট (trans-element)। তবে, কিছু মৌলিক TF আছে (TFIIA- TFIIH ফ্যাক্টর) যেগুলি  ডিএনএ-র সাথে সরাসরি আবদ্ধ না হয়ে আরএনএ পলিমেরেজ (RNA polymerase) এনজাইমের সাথে যুক্ত হয়ে একটি কমপ্লেক্স তৈরি করে, যা স্বভাবিকভাবে প্রতিলিপন প্রক্রিয়া শুরু করতে সহযোগিতা করে। অধিকাংশ ট্রান্সক্রিপশন ফ্যাক্টরের কাজ হল জিনগুলির প্রকাশ নিয়ন্ত্রণ করা, যাতে করে সেগুলি সঠিক সময়ে এবং সঠিক পরিমাণে জীবের কাঙ্ক্ষিত কোষে প্রকাশ পায়। TF-নিয়ন্ত্রণের মাধ্যমে একটি জিনের প্রকাশ বৃদ্ধি বা হ্রাস পায়। কোষ বিভাজন থেকে শুরু করে ভ্রূণের বিকাশ, কোষের বৃদ্ধি, কোষের মৃত্যু, ইমিউন সিস্টেম নিয়ন্ত্রণসহ দেহের বিভিন্ন কর্মকান্ড পরিচালনার জন্য TF-গুলি সমন্বিতভাবে কাজ করে। এমনকি, মানব-Y ক্রোমোজোমে অবস্থিত লিঙ্গ-নির্ধারক অঞ্চল SRY (sex-determining region Y) জিন দ্বারা এনকোড করা ট্রান্সক্রিপশন ফ্যাক্টর পূরুষ-লিঙ্গ নির্ধারণে প্রধান ভূমিকা পালন করে। মানবজিনোমে এ যাবৎ ১৬০০ ভিন্ন ধরনের ট্রান্সক্রিপশন ফ্যাক্টরের সন্ধান পাওয়া গিয়েছে। মানব জিনোমের প্রায় ১০% জিন ট্রান্সক্রিপশন ফ্যাক্টর সংশ্লেষণের সংকেত বহন করে, যা TF গ্রূপটিকে মানব প্রোটিনের একক বৃহত্তম পরিবার করে তুলেছে। সাইটোপ্লাজমে ভাসমান TF-গুলি সক্রিয় হতে পারে কোনো লাইগ্যান্ড (যেমন এস্ট্রোজেন)-র বাঁধনে কিংবা অধিকাংশ ক্ষেত্রে, কাইনেজ এনজাইম দ্বারা ফসফোরিলেশনের মাধ্যমে, অথবা সক্রিয় হয় সমজাতীয় (যেমন, estrogen receptor) বা বিজাতীয় (যেমন, cFos/cJun) ডাইমার তৈরির মাধ্যমে। প্রসঙ্গতঃ TF-গুলিকে বলা হয় তৃতীয় গ্ৰুপের বার্তাবাহী অণু (third messenger molecule), যেমন দ্বিতীয় গ্ৰুপের বার্তাবাহী অণু হচ্ছে Ca2+, cAMP, cGMP ও IP3, এবং প্রথম গ্ৰুপের বার্তাবাহী অণু হচ্ছে একটি লাইগ্যান্ড, যেমন হরমোন। এই প্রবন্ধে, জাইগোট জিনোম সক্রিয়তায় প্রাথমিক ভ্রূণে যে ট্রান্সক্রিপশন ফ্যাক্টরটি অপরিহার্য, সেটি হলো মানব DUOX বা DUOX4। এছাড়াও রয়েছে OCT3/4, SOX2, এবং NANOG।

ট্রান্সপোজেবল এলিমেন্ট (Transposable element, TE): জিনোমে বেশ কিছু ডিএনএ-র খন্ডসমূহ সমগ্র জিনোমজুড়ে ছুটোছুটি করে; এরা ট্রান্সপোজেবল এলিমেন্ট (TE) নামে পরিচিত, যেমন অ্যালু (Alu) এলিমেন্ট। TE রয়েছে দুই ধরনের: ট্রান্সপোজন (transposon) ও রেট্রো-ট্রান্সপোজন (retro-transposon)। এই দুইয়ের মধ্যে পার্থক্য হল: ট্রান্সপোজনগুলি কাট এন্ড পেস্ট (cut and pase) পদ্ধতি অনুসরণ ক’রে স্থান বদল করে, জিনোমে এদের সংখ্যা কম (জিনোমের ৩%); আর, রেট্রোট্রান্সপোজনগুলি স্থান বদল করে না বটে, কিন্তু কপি এন্ড পেস্ট (copy and paste)এর মাধ্যমে তাদের সংখ্যা বৃদ্বি করে এবং জিনোম বা বংশানুসমগ্রের এখানে-সেখানে নিজেদের একীভূত করে নেয়। জিনোমে এদের সংখ্যা অনেক বেশি, জিনোমের প্রায় ৪২ শতাংশ। গত শতাব্দীর চল্লিশের দশকে ভুট্টা নিয়ে গবেষণা করতে গিয়ে বারবারা ম্যাকক্লিনটক (Barbara McClintock) ডিএনএ-র এই চলিষ্ণু বৈশিষ্ট্য অবলোকন করেছিলেন এবং তাঁর আবিষ্কার সনাতন জিনতত্ত্বে এক বিপ্লব এনেছিল, যদিও প্রায় ত্রিশটি বছর তাঁর আবিষ্কারে কেও গুরুত্ব দেয়নি। অবশেষে, এই বিষয়ে একটি আন্তর্জাতিক স্বীকৃতি পেয়ে তিনি নোবেল পুরস্কার পান ১৯৮৩ সালে। তিনি দেখিয়েছিলেন, প্রতিটি ট্রান্সপোজন এক বিশেষ ধরনের এনজাইম ‘ট্রান্সপোজেজ’ (transposase) তৈরি করে, যা ‘কাট এবং পেস্ট’ প্রক্রিয়া দ্বারা ট্রান্সপোজন-খন্ডটিকে জিনোমের অন্য অংশে জোড়া দিতে সহায়তা করে। কেটে দেয়া ও জোড়া দেয়ার শূন্যস্থানগুলি পূরণ হয় মানব ডিএনএ পলিমেরেজ ও ডিএনএ লাইগেজ উৎসেচক দ্বারা। আশ্চর্যের বিষয় হচ্ছে, এদের জঙ্গমতার পেছনে কোনো সঠিক নিয়মনীতি নেই, রীতিমত এক ধরনের হঠকারিতা। দেখুন রেট্রোট্রান্সপোজোন। 

রেট্রোট্রান্সপোজোন (Retrotransposon): রেট্রোট্রান্সপোজোন হল ডিএনএ-তে একটি চলিষ্ণু উপাদান (ট্রান্সপোজেবল এলিমেন্ট), যা ইউক্যারিওটিক জিনোমে একীভূত হওয়ার জন্য নিজেদের একটি ডিএনএ কপি তৈরি করতে বিপরীত প্রতিলিপন ব্যবহার করে। তাই রেট্রোভাইরাসের মতো, ইউক্যারিওটিক জিনোমেও রিভার্স ট্রান্সক্রিপ্টেজ (RT), RNase H, এবং প্রোটিয়েজ জিনগুলি অবস্থান করে, তবে জিনোমে ভাইরাসের ক্যাপসিড জিনের অভাব থাকায় তারা (রেট্রোট্রান্সপোজোন) ভাইরাস তৈরি করতে পারে না, কিন্তু  বংশপরম্পরায় জনন কোষের মাধ্যমে সেগুলি ছড়িয়ে পড়ে বংশধরদের মধ্যে। একই জিনোমের মধ্যেও, মধ্যবর্তী আরএনএ কপি তৈরির মাধ্যমে তারা জিনোমের এক অবস্থান থেকে অন্য অবস্থানে স্থানান্তরিত হতে পারে। এভাবেই জিনোমের অবারিত প্রসার ঘটেছে। প্রসঙ্গতঃ মানবজিনোমে (৩.২ বিলিয়ন নিউক্লিওটাইড) রেট্রোট্রান্সপোজনগুলি জুড়ে রয়েছে প্রায় ৪২ শতাংশ, অর্থাৎ জিনোমের প্রায় অর্ধেক। গবেষণাগারে, RT ব্যবহৃত হয় ক্লোনিং ও রিভার্স ট্রান্সক্রিপশন পলিমারেজ চেইন রিঅ্যাকশন (RT-PCR) নামক একটি কৌশলে।


রেট্রোট্রান্সপোজনগুলি আকারে বেশ বড়। এরা স্থান বদল করে না বটে, কিন্তু কপি এন্ড পেস্ট (copy and paste)এর মাধ্যমে শুধু তাদের সংখ্যা বৃদ্বি করে এবং বংশানুসমগ্রের এখানে-সেখানে নিজেদের একীভূত করে নেয়। এভাবেই মানবসহ সুকেন্দ্রিক জীবের জিনোম ক্রমবর্ধমান। বর্তমান মানবজিনোমে (৩.২ বিলিয়ন নিউক্লিওটাইড) রেট্রো-ট্রান্সপোজনগুলি জুড়ে রয়েছে প্রায় ৪২ শতাংশ, অর্থাৎ জিনোমের প্রায় অর্ধেক। রেট্রো-ট্রান্সপোজন তিনভাগে বিভক্ত: LINE (long interspersed nuclear elements, ৬ kb), SINE (Short interspersed nuclear elements, ৫০০ bp) এবং LTR (long terminal repeats)-রেট্রো-ট্রান্সপোজন। LINE ও SINE গ্রুপে LTR থাকে না। রেট্রোভাইরাসের (যেমন, HIV) মতো LTR-রেট্রোট্রান্সপোজোন ও LINE এলিমেন্টগুলিতে ‘রিভার্স ট্রান্সক্রিপটেজ’ (reverse transcriptase) এনজাইম তৈরি করবার জন্য জিন রয়েছে। তাই খুব সহজেই তাদের আরএনএ-প্রতিলিপিগুলি (RNA transcripts) ডিএনএ-তে রূপান্তরিত হয়ে মানবজিনোমে প্রবেশ করে। ক্রমান্বয়ে, এভাবেই জিনোমের অবারিত প্রসার ঘটেছে, বেড়েছে নিউক্লীয়টাইডের সংখ্যা। রেট্রোট্রান্সপোজোনগুলিতে ‘রিভার্স ট্রান্সক্রিপটেজ’ জিন বিদ্যমান এবং বর্তমানে, মানবজিনোমে LINE এলিমেন্ট রয়েছে প্রায় ৮ লক্ষ ৫০ হাজার কপি। SINE রেট্রোট্রান্সপোজন ‘রিভার্স ট্রান্সক্রিপটেজ’ তৈরির জিন ধারণ করে না,  তাই তারা সহযোগিতা নেয় LINE থেকে সৃষ্ট ‘‘রিভার্স ট্রান্সক্রিপটেজ’-র। মানবজিনোমসহ সকল ইউক্যারিওট জিনোমে বিশাল এই ট্রান্সপোজেবল উপাদান (TE)-পরিবারটি রয়েছে যুগ-যুগান্তর পরজীবী-ডিএনএ হিসেবে। গুরুত্বপূর্ণ জিনগুলির মধ্যে এদের অনুপ্রবেশ ভয়ানক রকমের রোগ (যেমন ক্যান্সার, নিউরো-ডিজেনারেটিভ বা স্নায়বিক অবক্ষয়মূলক রোগ) ও জিনোম অস্থিরতার সৃষ্টি করে। সাম্প্রতিক একটি গবেষণায় দেখা গিয়েছে যে, জিনোম অস্থিরতা সৃষ্টিকারী এই ট্রান্সপোজেবল উপাদানগুলির বিশেষকরে অ্যাডেনিন নিউক্লিওবেসের প্রক্রমমান মিথিলেশন (methylation) জীবের বার্ধক্য প্রক্রিয়ায় উল্লেখযোগ্যভাবে অবদান রাখে। দেখা গিয়েছে, TE-গুলির প্রকাশ দমন ক’রে, অথবা Piwi-piRNA সঙ্কেতপথকে অতিরিক্ত প্রকাশ ক’রে জীবের আয়ুষ্কাল উল্লেখযোগ্য হারে বৃদ্ধি পেয়েছে (Sturm Á et al., Nature Commun. 14, 2023)।